
Academia de Inteligencia Neuraxon · Volumen 12 · Por el equipo científico Qubic
El cerebro no tiene un reloj central. Tiene muchos, distribuidos por el tejido y ajustados a escalas que van desde el microsegundo hasta las estaciones del año.
Sabemos que la inteligencia no se calcula en pasos, sino en el tiempo , en el que la neurona actúa como un sistema dinámico: un estado que cambia continuamente y nunca se reinicia. Pero no basta con que cada unidad viva en tiempo continuo. Un organismo tiene que medir intervalos, anticipar lo que viene, aprender de causas que ocurrieron hace segundos y, al mismo tiempo, permanecer estable durante años. Estos son problemas temporales diferentes, y el cerebro no los resuelve con el mismo mecanismo.
Durante décadas, la psicología del tiempo buscó un único reloj interno, una especie de marcapasos que emitiría pulsos y un contador que los acumularía. Esa idea tuvo éxito descriptivo, pero la neurociencia siguió encontrando otra cosa. La literatura actual distingue entre modelos dedicados, que postulan un circuito especializado en medir el tiempo, y modelos intrínsecos, en los que el tiempo se lee a partir de la propia evolución de la actividad neuronal (Ivry & Schlerf, 2008). No hay un único cronómetro. Hay mecanismos distribuidos, especializados según la escala y la función: el cerebelo para intervalos breves y precisos, los circuitos cortico-estriatales para intervalos de segundos, y la corteza para integrar secuencias largas (Merchant, Harrington & Meck, 2013; Paton & Buonomano, 2018).
Del microsegundo a las estaciones: el tiempo que el cerebro ya sabe manejar
El cerebro gestiona simultáneamente eventos que duran menos que un parpadeo y ciclos que duran meses. Ninguna otra máquina cubre un rango tan amplio con el mismo tejido.
En el extremo más rápido está la localización de los sonidos. Un ruido que viene de la izquierda llega al oído izquierdo algunos decenas o cientos de microsegundos antes que al derecho. Los circuitos del tronco encefálico detectan esa diferencia y la convierten en una dirección en el espacio (Grothe, Pecka & McAlpine, 2010). No somos conscientes del cálculo; simplemente giramos la cabeza hacia el sonido. Un poco más arriba, en la escala de decenas de milisegundos, está el habla. Lo que distingue “ba” de “pa” es, en gran medida, cuánto tarda la voz en comenzar a vibrar después de que se abren los labios (tiempo de inicio de la voz). Una diferencia de unos pocos decenas de milisegundos cambia la consonante que oímos (Lisker & Abramson, 1964).
En la escala de los segundos está casi todo lo que hacemos intencionalmente: atrapar una pelota en vuelo, seguir el ritmo de una canción, esperar nuestro turno en una conversación, notar que un semáforo tarda más de lo habitual. Aquí el cerebro no solo percibe: también anticipa. Sabe cuándo debería llegar lo siguiente y se sorprende si no ocurre.
Aparecen cambios a escala de minutos y horas más lentos, que no percibimos como eventos, sino como estados. Un olor intenso deja de notarse después de un tiempo: eso es la habituación. La atención se degrada después de un periodo de tarea mantenida. Y el organismo tiene ritmos ultradianos, es decir, ciclos más cortos que un día que se repiten varias veces en veinticuatro horas. El más conocido es el del sueño: durante la noche alternamos entre fases de sueño no REM y REM en ciclos de aproximadamente noventa minutos. Las hormonas del estrés tampoco se liberan de forma continua, sino en pulsos de aproximadamente una vez por hora, y esa pulsatilidad cumple un propósito: los tejidos responden de manera distinta a una hormona que llega en pulsos que a la misma cantidad administrada de forma constante (Lightman & Conway-Campbell, 2010 - https://doi.org/10.1038/nrn2914).
El sueño merece una mención especial, porque combina dos relojes. Uno es una presión de sueño que se acumula con las horas de vigilia y se disipa durante el sueño. El otro es un ritmo de unas veinticuatro horas que abre y cierra la ventana de sueño independientemente de qué tan cansados estemos. Durante la vigilia, las sinapsis tienden a fortalecerse en general, y durante el sueño se reajustan hacia abajo: eso preserva lo que es relevante y le devuelve al cerebro espacio para aprender el día siguiente (Tononi & Cirelli, 2014 - https://doi.org/10.1016/j.neuron.2013.12.025).
Ese ritmo de veinticuatro horas es el ritmo circadiano, del latín circa diem, “alrededor de un día”. Su reloj maestro está en el núcleo supraquiasmático del hipotálamo, un pequeño grupo de neuronas (alrededor de veinte mil en roedores, contando ambos lados) ubicado justo encima del cruce de los nervios ópticos (Abrahamson & Moore, 2001). Dentro de cada una de sus células, un ciclo de genes y proteínas que se activan y se inhiben mutuamente tarda aproximadamente veinticuatro horas en completar un ciclo (Takahashi, 2017). La luz lo ajusta a la hora correcta mediante células de la retina que miden cuánta luz hay en el entorno (Hattar et al., 2002). El jet lag es la experiencia directa de ese reloj: en él, el mundo cambia la hora bruscamente y el reloj interno tarda días en reajustarse.
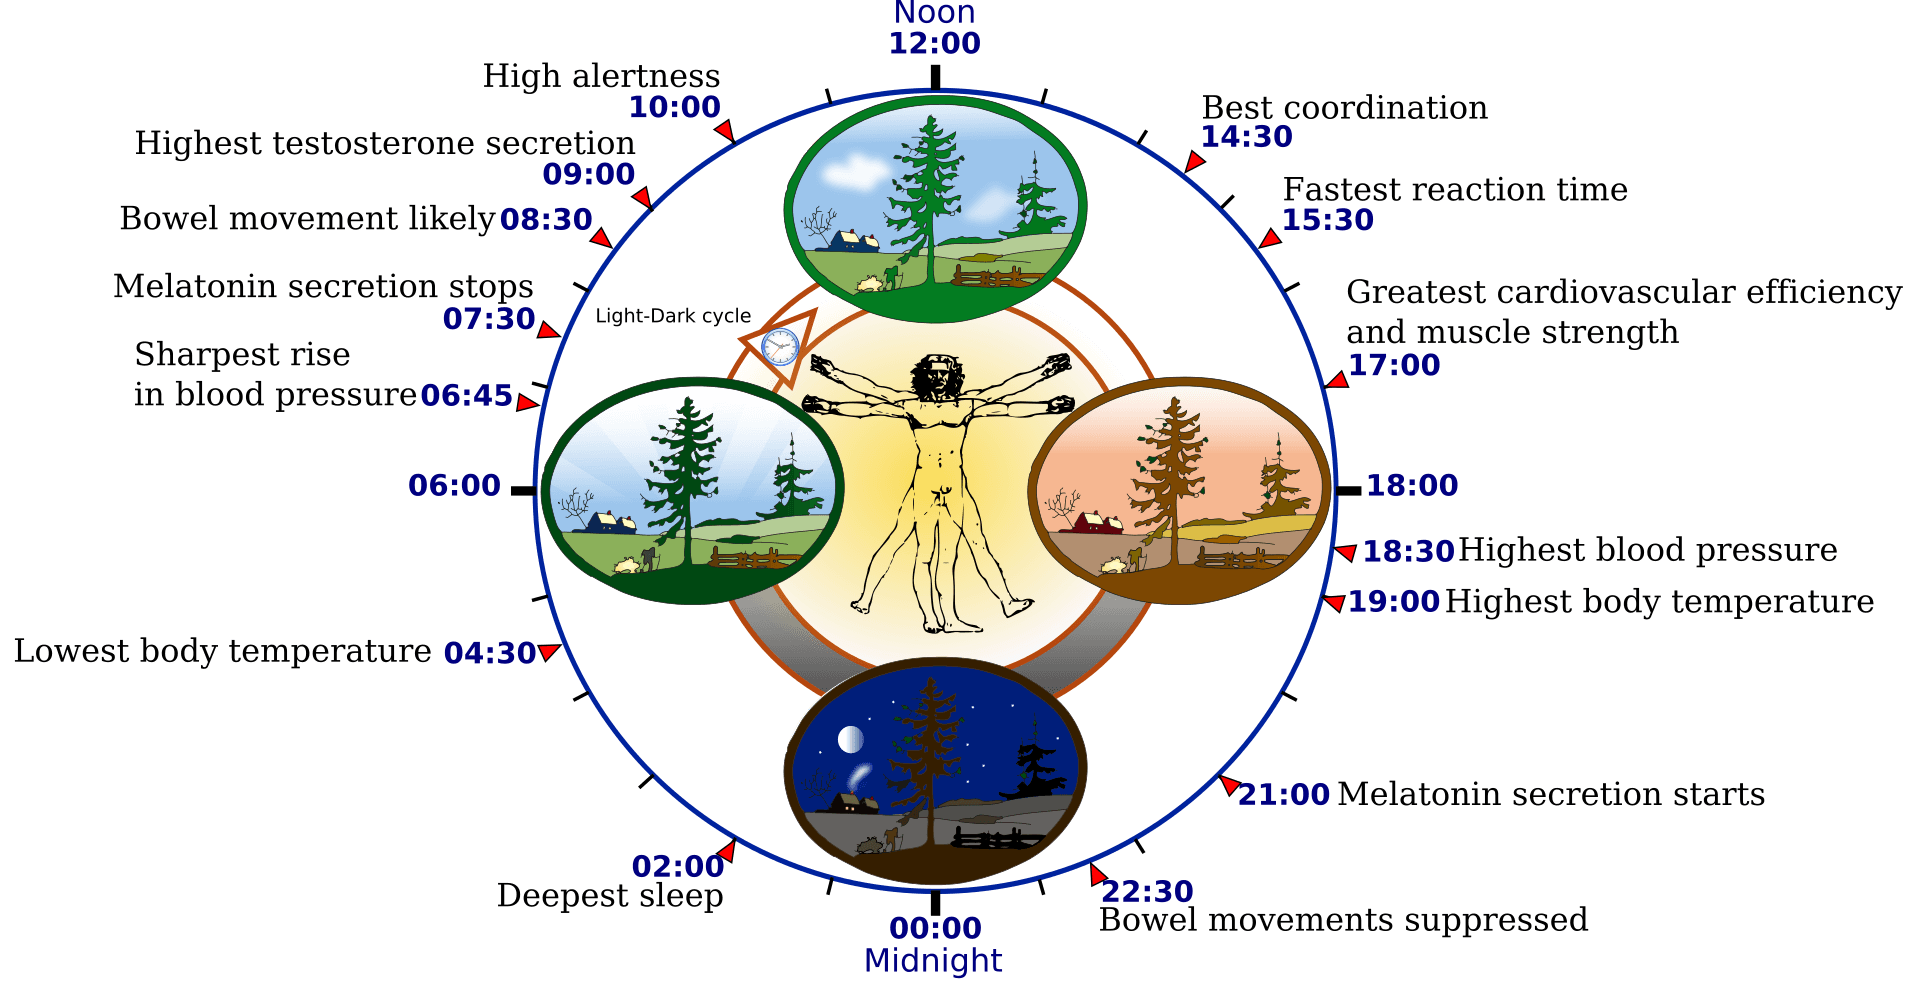
Figura 1. El ritmo circadiano a lo largo de un día de 24 horas. Un reloj maestro en el núcleo supraquiasmático sincroniza el sueño, la liberación hormonal y la alerta a lo largo del ciclo luz-oscuridad. Imagen: “Biological clock (human),”Wikimedia Commons (dominio público).
Por encima del día están los ritmos infradianos, más largos que veinticuatro horas. En la rata hembra, la densidad de espinas dendríticas en el hipocampo, esas pequeñas protrusiones donde se forman las sinapsis, disminuye alrededor de un 30% en solo veinticuatro horas dentro de un ciclo estral de cuatro o cinco días que sigue a los niveles de estradiol (Woolley & McEwen, 1992). El cableado de una estructura clave para la memoria cambia rítmicamente.
Más allá están los ritmos estacionales: la duración de la secreción nocturna de melatonina codifica la longitud de la noche, y por tanto muchos mamíferos saben qué época del año es (Wehr, 2001).
Todavía queda la escala de una vida. Durante el desarrollo hay periodos críticos en los que ciertos circuitos solo pueden organizarse dentro de una ventana temporal específica; si la experiencia llega tarde, el circuito no se forma de la misma manera (Hensch, 2005). El cerebro no solo mide el tiempo. Está construido en el tiempo.
Todas estas escalas coexisten en el mismo órgano e influyen entre sí. El reloj circadiano abre la ventana de sueño, el sueño reajusta las sinapsis, las hormonas modifican el cableado, y todo eso condiciona lo que se aprende en un segundo dado. Esa coexistencia es el fenómeno que queremos, en la medida de lo posible, simular.
Una jerarquía de ventanas temporales en la corteza
La primera pista de esa arquitectura es que distintas regiones corticales no “recuerdan” durante el mismo tiempo. Murray y colaboradores (https://doi.org/10.1038/nn.3862) midieron cuánto tarda la autocorrelación de la actividad espontánea de las neuronas en desvanecerse en diferentes áreas del macaco. Las áreas sensoriales tienen constantes de tiempo cortas: responden rápido y olvidan rápido. Las áreas prefrontales y de asociación tienen constantes mucho más largas: integran información durante más tiempo. La corteza está ordenada como una jerarquía de ventanas temporales.
En humanos, se observó algo equivalente con estímulos narrativos. Hasson y colaboradores (https://doi.org/10.1523/JNEUROSCI.5487-07.2008) presentaron películas desordenadas en diferentes escalas: desde fragmentos de segundos hasta escenas completas. Las áreas sensoriales primarias respondieron igual independientemente del desorden. Las áreas de orden superior respondieron de forma fiable solo cuando se preservaba la estructura a escalas largas. Cada región tiene su propia “ventana de integración temporal”. Kiebel, Daunizeau y Friston (https://doi.org/10.1371/journal.pcbi.1000209) dieron a esta observación una lectura computacional: si el mundo genera causas que cambian a diferentes velocidades, un cerebro que quiere predecirlo necesita una jerarquía de escalas temporales que refleje esa estructura.
Existe incluso una escala privilegiada para la experiencia. Pöppel (https://doi.org/10.1016/S1364-6613(97)01008-5) reunió evidencia de que integramos los eventos en ventanas de aproximadamente dos o tres segundos: un “presente” funcional que agrupa lo que percibimos como simultáneo o continuo. No es un número mágico. Es la consecuencia de que el sistema nervioso trabaja con varias constantes de tiempo anidadas.
El tiempo como estado: relojes poblacionales y células del tiempo
Si no hay un reloj central, ¿cómo sabe una red cuánto tiempo ha pasado? La respuesta más elegante es que el tiempo está codificado en el propio estado de la red. Buonomano y Maass (https://doi.org/10.1038/nrn2558) lo formularon como cómputo dependiente del estado, en el que una red recurrente recibe un estímulo que recorre una trayectoria de actividad que no se repite. En cada instante, su configuración es diferente. Un lector que aprende a reconocer esa configuración es suficiente para saber cuánto tiempo ha transcurrido desde el estímulo.
El hipocampo ofrece una versión especialmente llamativa de esta idea. Durante los intervalos vacíos de una tarea, algunas neuronas disparan en momentos específicos del intervalo, en secuencia, como si marcaran segundos sucesivos. Se les llamó células del tiempo (MacDonald et al., 2011; Eichenbaum, 2014). La corteza entorrinal lateral proporciona otra pieza: poblaciones cuya actividad deriva gradualmente con la experiencia, de modo que el tiempo transcurrido puede decodificarse a partir del cambio acumulado de la población (Tsao et al., 2018). En ambos casos, el tiempo no se mide con pulsos, sino con cambios de estado.
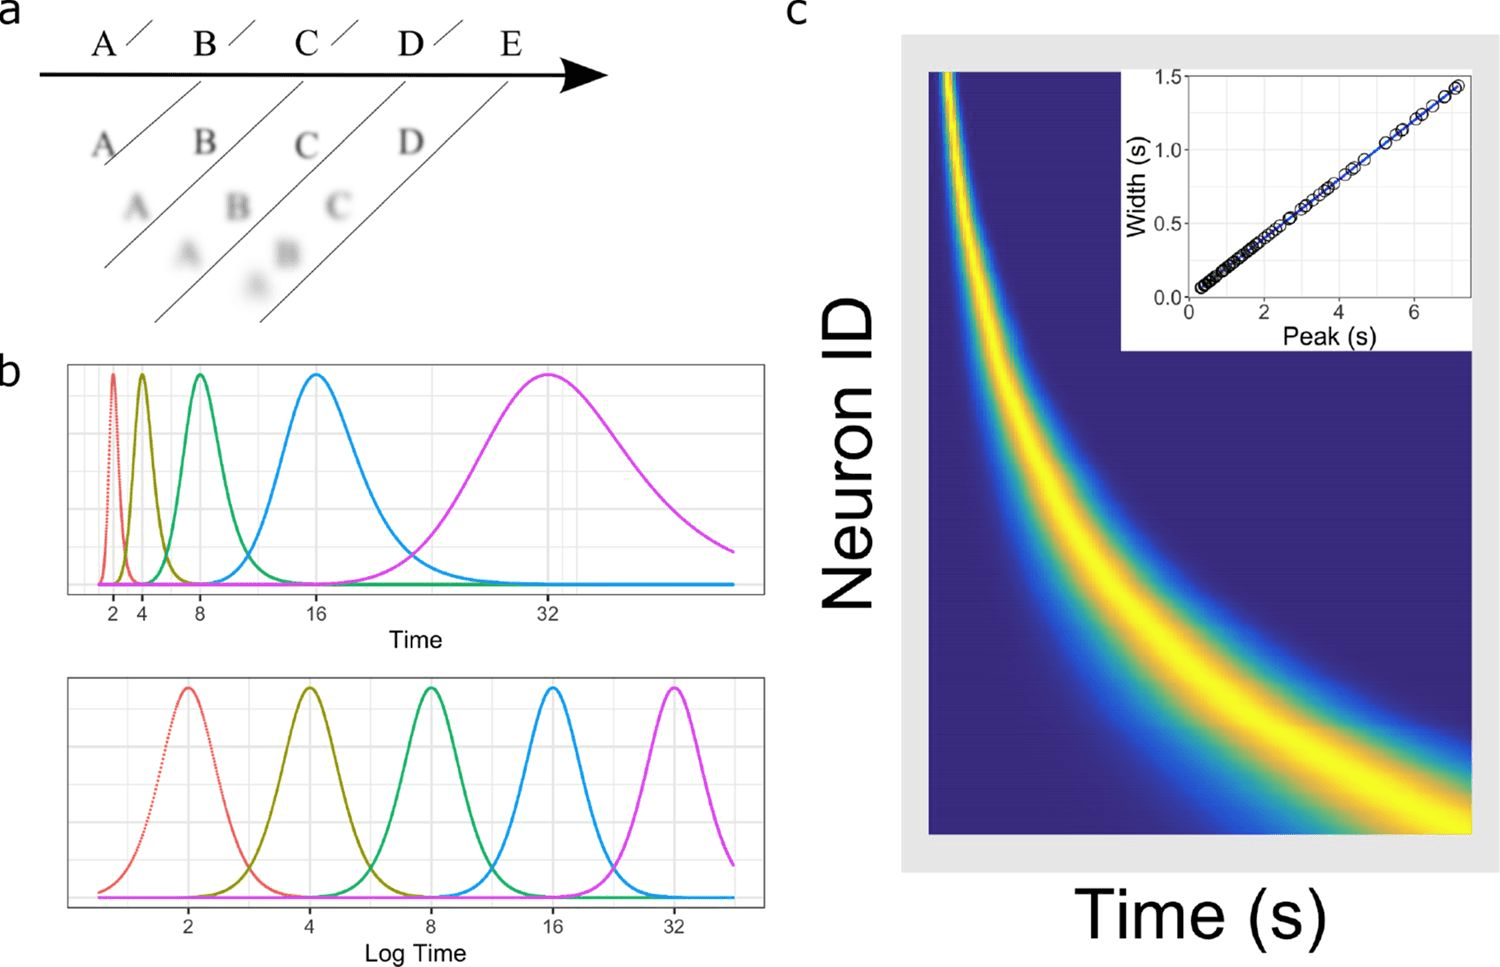
Figura 2. Las “células del tiempo” rellenan un intervalo: neuronas hipocampales individuales disparan en momentos sucesivos, así que el tiempo transcurrido se lee a partir de la secuencia de células activas en lugar de un reloj central. Imagen: Cao, Bladon et al. (2022),eLife 75353, Fig. 1,CC BY 4.0.
Aprendizaje en el tiempo: Ventanas de plasticidad sináptica
Representar el tiempo es una cosa. Aprender en el tiempo es otra. El mundo rara vez entrega la consecuencia en el mismo milisegundo en que ocurre la causa. El cerebro resuelve este problema con varias ventanas de plasticidad que se solapan.
La más breve es la plasticidad dependiente del momento del disparo (STDP, uno de los mecanismos de Neuraxon). Si una neurona presináptica dispara unos milisegundos antes que la postsináptica, la sinapsis se fortalece; si dispara después, se debilita. La ventana útil es de unos pocos decenas de milisegundos (Bi & Poo, 1998). Es un detector de causalidad local: muy preciso y muy corto.
Esa ventana no es suficiente para asociar una acción con una recompensa que llega un segundo después. Para eso existen los trazos de elegibilidad: la coincidencia de la actividad deja una marca transitoria en la sinapsis, y esa marca se convierte en un cambio de peso si llega una señal neuromoduladora mientras la marca persiste. En las espinas dendríticas del cuerpo estriado, la dopamina fortalece las sinapsis solo si llega entre aproximadamente 0,3 y 2 segundos después de la actividad (Yagishita et al., 2014). El hipocampo añade una plasticidad sináptica a escala temporal conductual, capaz de asociar entradas separadas por varios segundos y de crear un campo de lugar en un solo ensayo (Bittner et al., 2017).
Por encima de estas escalas están las más lentas. La consolidación y la plasticidad estructural operan durante horas o días, y lo que se consolida ya no depende de la actividad del momento.
Estabilidad sin congelarse: homeostasis de múltiples escalas
Una red que aprende con reglas hebbianas es inestable por naturaleza. Si lo que se dispara en conjunto se fortalece, lo que está fortalecido se dispara más y se fortalece aún más. Sin un contrapeso, la red se satura o se queda en silencio.
El cerebro tiene ese contrapeso. Turrigiano (2008) describió el escalamiento sináptico: cuando una neurona permanece demasiado activa durante horas, reduce proporcionalmente la fuerza de todas sus sinapsis; y si permanece demasiado silenciosa, la incrementa. La excitabilidad intrínseca se ajusta de manera similar (Desai, Rutherford & Turrigiano, 1999). En vivo, este bucle lento devuelve la actividad cortical a su punto de ajuste a lo largo de días, y lo hace de una manera dependiente de los estados de vigilia y sueño (Hengen et al., 2016).
Pero hay una dificultad. La plasticidad hebbiana actúa en segundos y la homeostasis sináptica en horas. Zenke, Gerstner y Ganguli (2017) mostraron que un regulador tan lento no puede, por sí solo, frenar esa inestabilidad rápida. La conclusión es que debe haber mecanismos compensatorios rápidos, que actúan a casi la misma velocidad que el aprendizaje, y que la homeostasis lenta se encarga de otra cosa: corregir la deriva a largo plazo. La estabilidad no la proporciona un termostato, sino una cascada de reguladores, cada uno en su propia escala.
La teoría de la memoria llega a una conclusión paralela. Benna y Fusi (2016) demostraron que las sinapsis con una sola escala temporal, si cambian rápido, aprenden bien pero olvidan pronto; y si cambian lentamente, retienen pero aprenden apenas. Las sinapsis con variables internas acopladas a diferentes escalas eluden ese dilema y multiplican la capacidad de memoria. La organización de múltiples escalas es la solución a un problema computacional.
¿Qué hace un Transformer con el tiempo?
Con todo este marco, podemos mirar la arquitectura que domina la inteligencia artificial actual. Un Transformer procesa una secuencia de fragmentos de texto (tokens). Para que el modelo sepa en qué orden aparecen, se añade una codificación posicional a cada token, donde un vector indica si es el primero, el segundo o el milésimo (Vaswani et al., 2017). Luego, el mecanismo de atención compara todos los tokens con todos los tokens a la vez.
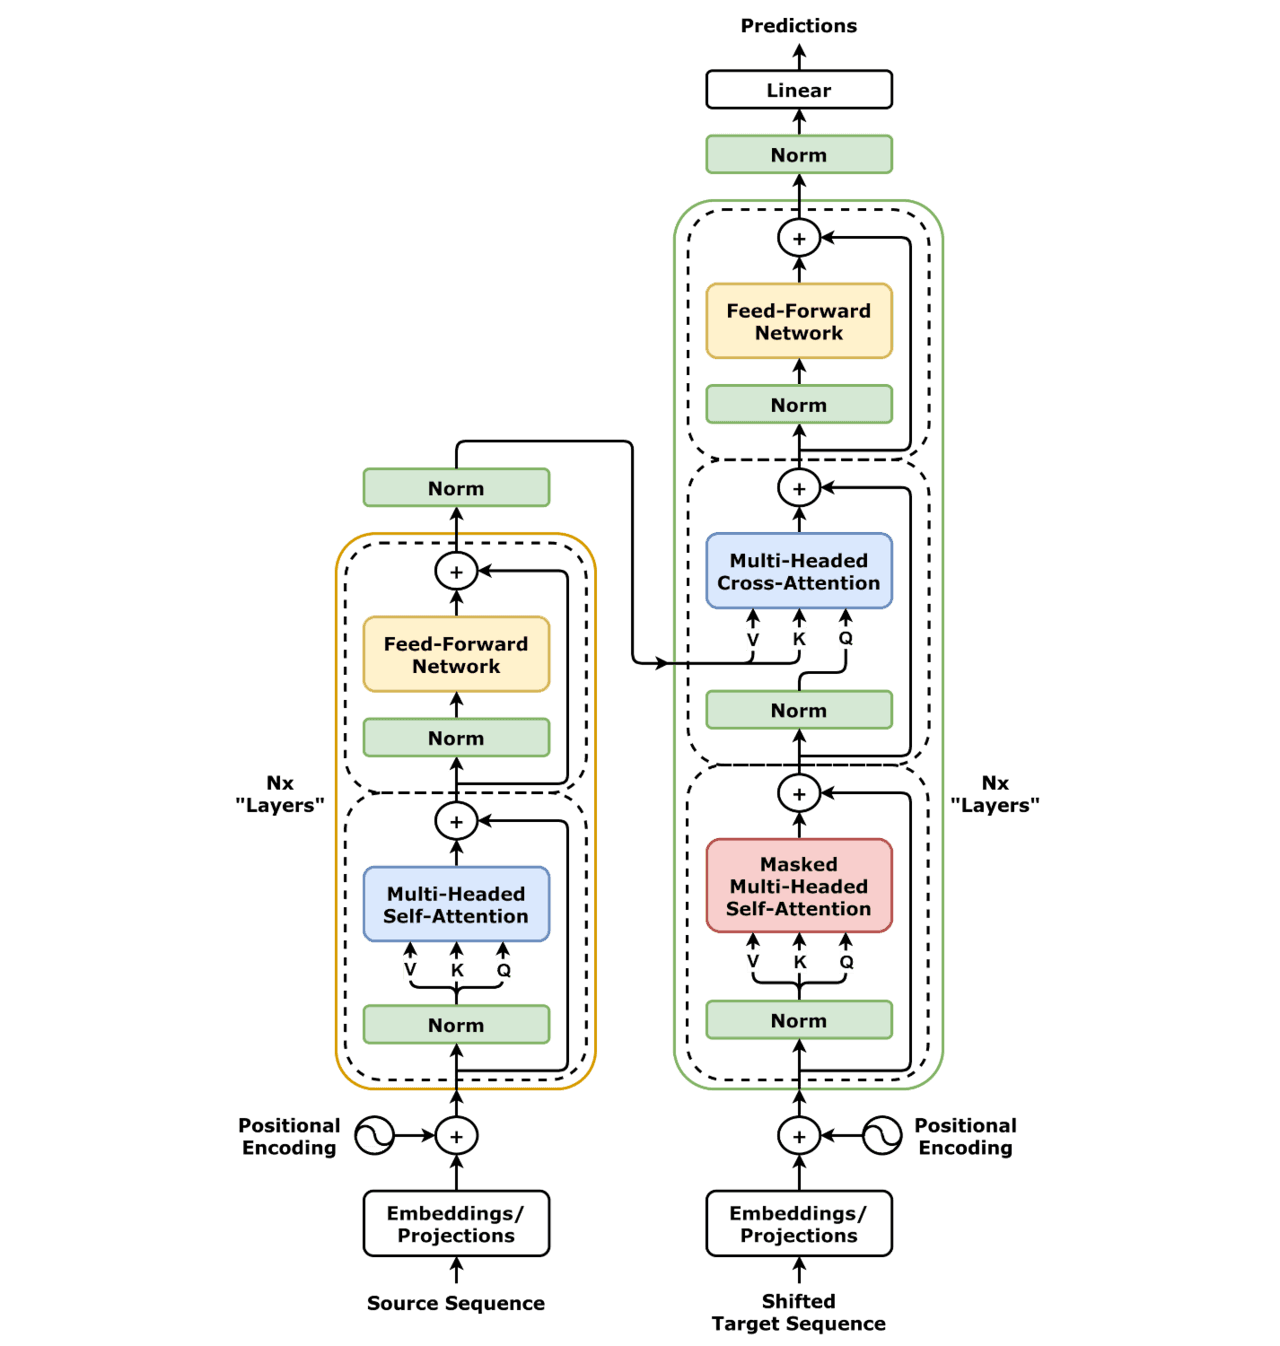
Figura 3. La arquitectura del Transformer. El orden se proporciona una vez, como una codificación posicional añadida a cada token; luego la autoatención compara todos los tokens simultáneamente, de modo que el modelo trata la posición de la secuencia como un índice en lugar de “vivir” a través del tiempo. Imagen: “Transformer, full architecture,”Wikimedia Commons (CC BY-SA 4.0).
La consecuencia es profunda. Para un Transformer, el tiempo es un índice. No hay duración, solo orden. Un silencio de un segundo y uno de una hora son indistinguibles si no generan tokens diferentes. Además, todo el contexto está disponible simultáneamente. El modelo no vive a través de la secuencia; la contempla completa, como un mapa extendido sobre una mesa. En términos neurocientíficos, ha convertido el tiempo en espacio.
Tampoco existen escalas de tiempo de aprendizaje durante el uso. Los pesos se fijan durante el entrenamiento y permanecen congelados. Lo que el modelo “recuerda” durante una conversación vive en su ventana de contexto, que es una memoria de trabajo externa y finita. Lo que sabe sobre el mundo se detiene en su fecha de corte. Entre la escala de la ventana de contexto y la escala del reentrenamiento, que se mide en meses, no hay nada.
Cuatro limitaciones de los Transformers que se derivan de esa elección
La primera limitación es la falta de sensibilidad a la duración. Muchos fenómenos del mundo físico y social dependen de cuánto dura algo, no solo de lo que ocurre antes. Los Transformers aplicados a series temporales ilustran el costo. Un modelo lineal simple superó a varias arquitecturas de Transformer especializadas en pronóstico de series largas, en parte porque la atención, al ser invariante a la permutación, pierde información sobre el orden temporal fino que la codificación posicional no restaura completamente (Zeng et al., 2023).
La segunda es la memoria plana. La ventana de contexto no tiene una jerarquía de escalas: todo lo que cabe está igualmente presente, y lo que no encaja desaparece. Ni siquiera dentro de la ventana el acceso es homogéneo. Los modelos recuperan peor la información ubicada en el medio de contextos largos que la información al inicio o al final (Liu et al., 2024). No hay un equivalente a las ventanas anidadas descritas por Murray y Hasson.
El tercero es la separación rígida entre aprender y actuar. Un Transformer no aprende mientras opera. Si se reentrena con nuevos datos sin precauciones, tiende a sobrescribir lo que vino antes: un fenómeno conocido desde hace décadas como interferencia catastrófica (McCloskey & Cohen, 1989). Es exactamente el dilema de una sola escala: si no hay variables lentas que protejan lo que ya se ha consolidado, lo rápido borra lo antiguo.
La cuarta es la estabilidad importada. La red no se regula a sí misma. Su estabilidad depende de normalizaciones matemáticas fijas, de cronogramas de tasa de aprendizaje diseñados por ingenieros y de un proceso de entrenamiento que termina. Funciona precisamente porque el sistema deja de cambiar. Un organismo no puede permitirse esa solución.
Nada de esto niega el poder de los Transformers. Explica por qué rinden tan bien en tareas en las que el mundo cabe en un texto y tan mal cuando hay que actuar, esperar, anticipar y corregir en un entorno que sigue moviéndose. Hay alternativas incluso dentro del deep learning, como redes de constante de tiempo líquida (Hasani et al., 2021) o modelos de espacio de estados. Son avances reales y confirman que el tiempo tiene que incorporarse a la dinámica.
Cómo Neuraxon 3.0 lo intenta: Homeostasis temporal de múltiples escalas (MSTH)
Neuraxon parte de una premisa opuesta a la del Transformer. El tiempo no se codifica como posición; más bien, es la variable sobre la cual evoluciona el estado de cada unidad. Neuraxon 2.0 ya introdujo procesamiento en tiempo continuo, sinapsis con componentes rápidos y lentos, y un mecanismo de CronoPlasticidad que permite que cada sinapsis ajuste su horizonte de memoria. Neuraxon 3.0, actualmente en desarrollo, reorganiza estas piezas en torno a la jerarquía de escalas que hemos descrito.
La primera decisión es separar lo que el cerebro separa. Una cosa es la corriente sináptica, que sube y se disipa en milisegundos según la cinética de los receptores. Otra es el peso, que persiste. Confluir ambas variables hace que la memoria dependa del ruido del instante (Destexhe, Mainen & Sejnowski, 1994; Tsodyks & Markram, 1997).
La segunda es apilar ventanas de plasticidad. En la escala de los milisegundos, una regla dependiente del orden de los disparos opera. En la escala de segundos, las trazas de elegibilidad que esperan una señal neuromoduladora, en línea con la dopamina retroactiva descrita experimentalmente (Yagishita et al., 2014; Brzosko, Schultz & Paulsen, 2015), y una plasticidad inspirada en el hipocampo a escala temporal conductual. A escalas más lentas, las compuertas de metaplastia y dominios astrocíticos que deciden cuánto puede cambiar un conjunto de sinapsis.
La tercera es la homeostasis de múltiples escalas, que en Neuraxon llamamos MSTH (Homeostasis Temporal de Múltiples Escalas). En lugar de un solo termostato, cuatro bucles regulatorios coordinados, desde uno ultrarrápido que amortigua los estallidos de actividad hasta uno lento que corrige la deriva a largo plazo. Es la traducción computacional del argumento de Zenke, Gerstner y Ganguli (2017): los reguladores rápidos contienen inestabilidad hebbiana y los lentos preservan el punto de ajuste sin congelar el aprendizaje. Criticidad, el régimen en el que la actividad ni se extingue ni se descontrola, se mide como una variable observable del sistema (Wilting & Priesemann, 2018).
Neuraxon 3.0 es hoy una arquitectura en diseño, y la contribución de MSTH se someterá a experimentos específicos en regímenes de largo horizonte antes de afirmar cualquier cosa sobre su efectividad. Tampoco incorpora todavía una fase de consolidación offline equivalente al sueño, que el panorama anterior sugiere que es esencial y que consideramos una de las principales tareas pendientes.
Por qué el tiempo importa para Qubic
La inteligencia que buscamos no responde preguntas cerradas. Actúa en entornos que cambian mientras actúa. Los juegos interactivos de ARC-AGI-3 muestran esto bien: no presentan un enunciado de problema, sino un mundo cuyas reglas se descubren jugando, turno a turno. Un sistema que no distingue entre lo que acaba de ocurrir y lo que ocurrió hace cincuenta movimientos, que no puede asociar una acción con su consecuencia retardada, y que no aprende mientras juega, está en desventaja estructural.
Por eso el tiempo no es un detalle de implementación en Neuraxon. Es el terreno sobre el que se decide si una arquitectura puede adaptarse. Y por eso tiene sentido desarrollarlo en una red como Qubic, que opera continuamente y con estado, donde un sistema puede persistir, cambiar y regularse sin que nadie tenga que reiniciarlo. Al cerebro le tomó cientos de millones de años aprender a gestionar el tiempo en muchas escalas a la vez. Estamos intentando computar esa característica única.
Referencias
Abrahamson, E. E., & Moore, R. Y. (2001). Núcleo supraquiasmático en el ratón: Innervación retiniana, organización intrínseca y proyecciones eferentes. Brain Research, 916(1–2), 172–191. https://doi.org/10.1016/S0006-8993(01)02890-6
Benna, M. K., & Fusi, S. (2016). Principios computacionales de la consolidación de memoria sináptica. Nature Neuroscience, 19(12), 1697–1706. https://doi.org/10.1038/nn.4401
Bi, G. Q., & Poo, M. M. (1998). Modificaciones sinápticas en neuronas del hipocampo en cultivo: Dependencia del momento del disparo, la fuerza sináptica y el tipo de célula postsináptica. Journal of Neuroscience, 18(24), 10464–10472. https://doi.org/10.1523/JNEUROSCI.18-24-10464.1998
Bittner, K. C., Milstein, A. D., Grienberger, C., Romani, S., & Magee, J. C. (2017). Plasticidad sináptica en la escala temporal conductual que subyace a los campos de lugar de CA1. Science, 357(6355), 1033–1036. https://doi.org/10.1126/science.aan3846
Borbély, A. A. (1982). Un modelo de dos procesos para la regulación del sueño. Human Neurobiology, 1(3), 195–204.
Brzosko, Z., Schultz, W., & Paulsen, O. (2015). Modulación retroactiva de la plasticidad dependiente del momento del disparo mediante dopamina. eLife, 4, e09685. https://doi.org/10.7554/eLife.09685
Buonomano, D. V., & Maass, W. (2009). Cómputos dependientes del estado: Procesamiento espaciotemporal en redes corticales. Nature Reviews Neuroscience, 10(2), 113–125. https://doi.org/10.1038/nrn2558
Desai, N. S., Rutherford, L. C., & Turrigiano, G. G. (1999). Plasticidad en la excitabilidad intrínseca de neuronas piramidales corticales. Nature Neuroscience, 2(6), 515–520. https://doi.org/10.1038/9165
Destexhe, A., Mainen, Z. F., & Sejnowski, T. J. (1994). Síntesis de modelos para membranas excitables, transmisión sináptica y neuromodulación usando un formalismo cinético común. Journal of Computational Neuroscience, 1(3), 195–230. https://doi.org/10.1007/BF00961734
Eichenbaum, H. (2014). Células del tiempo en el hipocampo: una nueva dimensión para mapear memorias. Nature Reviews Neuroscience, 15(11), 732–744. https://doi.org/10.1038/nrn3827
Grothe, B., Pecka, M., & McAlpine, D. (2010). Mecanismos de localización del sonido en mamíferos. Physiological Reviews, 90(3), 983–1012. https://doi.org/10.1152/physrev.00026.2009
Hasani, R., Lechner, M., Amini, A., Rus, D., & Grosu, R. (2021). Redes de constante de tiempo líquida. Proceedings of the AAAI Conference on Artificial Intelligence, 35(9), 7657–7666. https://doi.org/10.1609/aaai.v35i9.16936
Hasson, U., Yang, E., Vallines, I., Heeger, D. J., & Rubin, N. (2008). Una jerarquía de ventanas receptivas temporales en la corteza humana. Journal of Neuroscience, 28(10), 2539–2550. https://doi.org/10.1523/JNEUROSCI.5487-07.2008
Hattar, S., Liao, H.-W., Takao, M., Berson, D. M., & Yau, K.-W. (2002). Células ganglionares de la retina que contienen melanopsina: Arquitectura, proyecciones y fotosensibilidad intrínseca. Science, 295(5557), 1065–1070. https://doi.org/10.1126/science.1069609
Hengen, K. B., Torrado Pacheco, A., McGregor, J. N., Van Hooser, S. D., & Turrigiano, G. G. (2016). La homeostasis de la tasa de descarga neuronal se inhibe por el sueño y se promueve por la vigilia. Cell, 165(1), 180–191. https://doi.org/10.1016/j.cell.2016.01.046
Hensch, T. K. (2005). Plasticidad de periodos críticos en circuitos corticales locales. Nature Reviews Neuroscience, 6(11), 877–888. https://doi.org/10.1038/nrn1787
Ivry, R. B., & Schlerf, J. E. (2008). Modelos dedicados e intrínsecos de la percepción del tiempo. Trends in Cognitive Sciences, 12(7), 273–280. https://doi.org/10.1016/j.tics.2008.04.002
Kiebel, S. J., Daunizeau, J., & Friston, K. J. (2008). Una jerarquía de escalas temporales y el cerebro. PLoS Computational Biology, 4(11), e1000209. https://doi.org/10.1371/journal.pcbi.1000209
Kleitman, N. (1982). Ciclo básico reposo-actividad—22 años después. Sleep, 5(4), 311–317. https://doi.org/10.1093/sleep/5.4.311
Lightman, S. L., & Conway-Campbell, B. L. (2010). El papel crucial de la actividad pulsátil del eje HPA para la equilibración dinámica continua. Nature Reviews Neuroscience, 11(10), 710–718. https://doi.org/10.1038/nrn2914
Lisker, L., & Abramson, A. S. (1964). Un estudio entre lenguas sobre el voseo en oclusivas iniciales: Mediciones acústicas. Word, 20(3), 384–422. https://doi.org/10.1080/00437956.1964.11659830
Liu, N. F., Lin, K., Hewitt, J., Paranjape, A., Bevilacqua, M., Petroni, F., & Liang, P. (2024). Perdidos en el medio: Cómo los modelos de lenguaje usan contextos largos. Transactions of the Association for Computational Linguistics, 12, 157–173. https://doi.org/10.1162/tacl_a_00638
MacDonald, C. J., Lepage, K. Q., Eden, U. T., & Eichenbaum, H. (2011). Las “células del tiempo” hipocampales cierran la brecha en la memoria para eventos discontinuos. Neuron, 71(4), 737–749. https://doi.org/10.1016/j.neuron.2011.07.012
McCloskey, M., & Cohen, N. J. (1989). Interferencia catastrófica en redes conexionistas: El problema de aprendizaje secuencial. Psychology of Learning and Motivation, 24, 109–165. https://doi.org/10.1016/S0079-7421(08)60536-8
Merchant, H., Harrington, D. L., & Meck, W. H. (2013). Base neural de la percepción y la estimación del tiempo. Annual Review of Neuroscience, 36, 313–336. https://doi.org/10.1146/annurev-neuro-062012-170349
Murray, J. D., Bernacchia, A., Freedman, D. J., Romo, R., Wallis, J. D., Cai, X., Padoa-Schioppa, C., Pasternak, T., Seo, H., Lee, D., & Wang, X.-J. (2014). Una jerarquía de escalas temporales intrínsecas en toda la corteza de primates. Nature Neuroscience, 17(12), 1661–1663. https://doi.org/10.1038/nn.3862
Paton, J. J., & Buonomano, D. V. (2018). La base neural del temporizado: Mecanismos distribuidos para funciones diversas. Neuron, 98(4), 687–705. https://doi.org/10.1016/j.neuron.2018.03.045
Pöppel, E. (1997). Un modelo jerárquico de la percepción temporal. Trends in Cognitive Sciences, 1(2), 56–61. https://doi.org/10.1016/S1364-6613(97)01008-5
Takahashi, J. S. (2017). Arquitectura transcripcional del reloj circadiano de los mamíferos. Nature Reviews Genetics, 18(3), 164–179. https://doi.org/10.1038/nrg.2016.150
Tononi, G., & Cirelli, C. (2014). El sueño y el precio de la plasticidad: De la homeostasis sináptica y celular a la consolidación y la integración de la memoria. Neuron, 81(1), 12–34. https://doi.org/10.1016/j.neuron.2013.12.025
Tsao, A., Sugar, J., Lu, L., Wang, C., Knierim, J. J., Moser, M.-B., & Moser, E. I. (2018). Integrar el tiempo a partir de la experiencia en la corteza entorrinal lateral. Nature, 561(7721), 57–62. https://doi.org/10.1038/s41586-018-0459-6
Tsodyks, M. V., & Markram, H. (1997). El código neural entre neuronas piramidales de la neocorteza depende de la probabilidad de liberación del neurotransmisor. Proceedings of the National Academy of Sciences, 94(2), 719–723. https://doi.org/10.1073/pnas.94.2.719
Turrigiano, G. G. (2008). La neurona autoajustable: escalamiento sináptico de sinapsis excitatorias. Cell, 135(3), 422–435. https://doi.org/10.1016/j.cell.2008.10.008
Vaswani, A., Shazeer, N., Parmar, N., Uszkoreit, J., Jones, L., Gomez, A. N., Kaiser, Ł., & Polosukhin, I. (2017). Attention is all you need. En Advances in Neural Information Processing Systems 30 (pp. 5998–6008). https://arxiv.org/abs/1706.03762
Wehr, T. A. (2001). Fotorperio(d)icidad en humanos y otros primates: Evidencia e implicaciones. Journal of Biological Rhythms, 16(4), 348–364. https://doi.org/10.1177/074873001129002060
Wilting, J., & Priesemann, V. (2018). Inferir estados dinámicos colectivos a partir de sistemas escasamente observados. Nature Communications, 9, 2325. https://doi.org/10.1038/s41467-018-04725-4
Woolley, C. S., & McEwen, B. S. (1992). El estradiol media la fluctuación de la densidad de sinapsis hipocampales durante el ciclo estral en la rata adulta. Journal of Neuroscience, 12(7), 2549–2554. https://doi.org/10.1523/JNEUROSCI.12-07-02549.1992
Yagishita, S., Hayashi-Takagi, A., Ellis-Davies, G. C. R., Urakubo, H., Ishii, S., & Kasai, H. (2014). Una ventana temporal crítica para las acciones de la dopamina sobre la plasticidad estructural de las espinas dendríticas. Science, 345(6204), 1616–1620. https://doi.org/10.1126/science.1255514
Zeng, A., Chen, M., Zhang, L., & Xu, Q. (2023). ¿Son eficaces los transformadores para la predicción de series temporales? Proceedings of the AAAI Conference on Artificial Intelligence, 37(9), 11121–11128. https://doi.org/10.1609/aaai.v37i9.26317
Zenke, F., Gerstner, W., & Ganguli, S. (2017). El “paradójico” temporal del aprendizaje hebbiano y la plasticidad homeostática. Current Opinion in Neurobiology, 43, 166–176. https://doi.org/10.1016/j.conb.2017.03.015
Academia de Inteligencia Neuraxon: La serie completa
Sigue explorando la ciencia detrás de la IA inspirada en el cerebro, Aigarth y Neuraxon en los volúmenes anteriores de la Neuraxon Intelligence Academy:
NIA Volumen 1: Por qué la inteligencia no se computa en pasos, sino en el tiempo — Explora por qué la inteligencia biológica opera en tiempo continuo en lugar de pasos discretos de cómputo como los LLM tradicionales.
NIA Volumen 2: Dinámicas ternarias como modelo de inteligencia viviente — Explica las dinámicas ternarias y por qué la lógica de tres estados (excitatoria, neutra, inhibitoria) importa para modelar sistemas vivos.
NIA Volumen 3: Neuromodulación y IA inspirada en el cerebro — Cubre la neuromodulación y cómo la señalización química del cerebro (dopamina, serotonina, acetilcolina, norepinefrina) inspira la arquitectura de Neuraxon.
NIA Volumen 4: Redes neuronales en IA y neurociencia — Una comparación profunda de redes neuronales biológicas, redes neuronales artificiales y el enfoque de “tercer camino” de Neuraxon.
NIA Volumen 5: Astrocitos e IA inspirada en el cerebro — Cómo el “gating” astrocítico transforma la plasticidad de redes neuronales a través del marco AGMP en Neuraxon.
NIA Volumen 6: Máquinas conscientes vs. organismos inteligentes: Conciencia de IA explicada — Explora la conciencia de IA a través de la lente de la Teoría del Espacio de Trabajo Global, la Teoría de la Información Integrada y la codificación predictiva.
NIA Volumen 7: El Juego de la Vida de Conway, vida artificial y ecosistemas digitales — La ciencia detrás de Qubic, Aigarth y la complejidad emergente y la criticidad autoorganizada de Neuraxon.
NIA Volumen 8: Criticidad cerebral y el cociente de ramificación en redes neuronales y artificiales — Por qué un cociente de ramificación cercano a 1 y la criticidad autoorganizada son principios de diseño bioinspirados en Neuraxon.
NIA Volumen 9: Los orígenes del factor g: de la educación y la neurociencia a la inteligencia artificial — Explora los orígenes del factor g a través de la educación, la neurociencia y la IA.
NIA Volumen 10: ¿Cómo medimos la inteligencia de una máquina? El factor g, ARC-AGI y el futuro de la evaluación de IA — El factor g, el benchmark ARC-AGI de François Chollet, la contaminación de datos en la evaluación de LLM y por qué la eficiencia de adquisición de habilidades es la prueba real de la inteligencia.
NIA Volumen 11: ¿Qué es la AGI? Los límites, visiones & definiciones de la inteligencia general artificial