
كتب بواسطة فريق كيوبيك العلمي
الدماغ ديناميكي وغير ثنائي
لا تعمل الشبكات الدماغية البيولوجية كمفتاح قرار بين النشاط والراحة. في الأنظمة الحية، تعني عدم النشاط نفسه الديناميكية. ستكون "الراحة" المطلقة غير متوافقة مع الحياة. كما رأينا في الفصل الأول، تتكشف الحياة في الزمن.
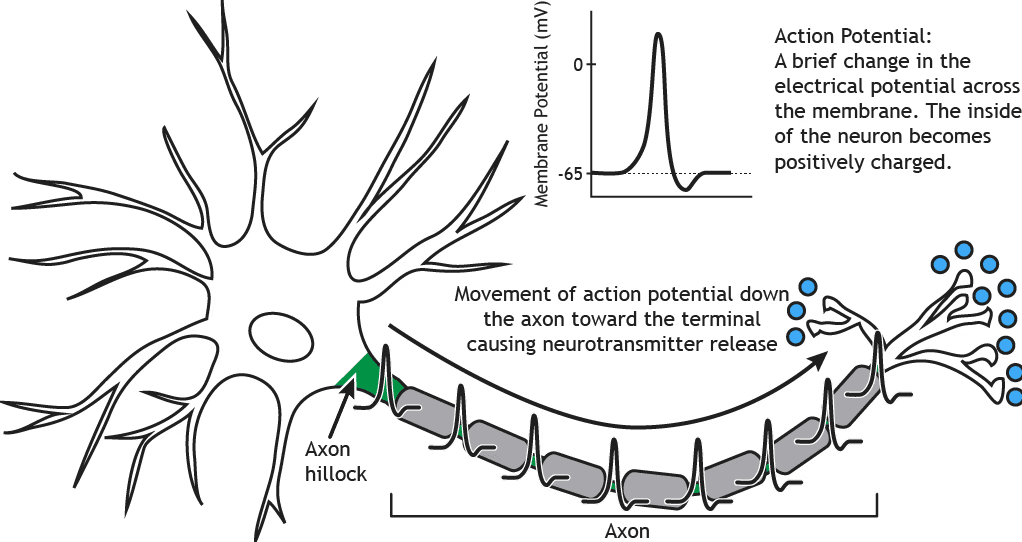
قد يبدو عصبون فردي كحدث كلي أو لا شيء، ينقل تيارًا كهربائيًا إلى عصبون آخر من أجل تثبيطه أو تحفيزه. ومع ذلك، قبل ذلك النقل، يتلقى العصبون باستمرار مدخلات إيجابية وسلبية في منطقة تسمى الشجيرات. إذا تجاوز المجموع العالمي لهذه المدخلات عتبة معينة، يحدث تغيير تكويني مادي، وينتشر التيار الكهربائي على طول المحور نحو العصبون التالي. في معظم الأوقات، يتم المعالجة العصبية تحت عتبة العمل، حيث يتم دمج التيارات المثيرة والمثبطة باستمرار.
في علم الأعصاب الحاسوبي، من المسلم به جيدًا أن الدماغ نظام ديناميكي مستمر، تتطور حالاته حتى في غياب المنبهات الخارجية (Deco et al., 2009; Northoff, 2018).
لا توجد أحداث منفصلة أو عمليات إعادة ضبط في الدماغ. كل منبّه خارجي يؤثر على نظام حي لديه بالفعل تكوين سابق. قد يميل المنبّه حالة مُثيرة أو مُثبِّطة، لكنه لا يميل حالة ثابتة أبدًا. إنها مثل كرة على ملعب كرة قدم: تؤدي المسار نفسه إلى نتائج مختلفة تبعًا للمواقع الديناميكية للاعبين. ومع وجود مسار متطابق، قد تفشل اللقطة أو تتحول إلى تمريرة حاسمة.
الآليات التي تُبقي العصبونات نشطة مستقلّة عن المنبهات الفورية معروفة جيدًا.
إحدى هذه الآليات تتكون من مدخلات دون عتبة (subthreshold)، التي تغيّر كمون الغشاء دون توليد جهد فعل.
وتشمل أمثلة أخرى المشابك الصامتة والنواتئ/الأشواك الشجرية، التي تحافظ على توصيلات كامنة بين العصبونات أو تعزز التنشيط المحلي.
تتضمن أهم آلية مستقبلات ميتابوتروبية مرتبطة بناقلات عصبية، تنظّم السياق. فهي لا تحدد مباشرة ما إذا سيتم إطلاق جهد الفعل. بدلًا من ذلك، تحدد ما هو ذو صلة وما هو غير ذي صلة، وما تنطوي عليه أي توقع/تنبؤ بالمكافأة يحملها منبّه، وما مستوى التأهب أو الخطر الموجود، وكم توجد من الجِدّة (novelty) داخل النظام، وما درجة الانتباه المستدام المطلوبة، وأي توازن مناسب بين الاستكشاف والاستغلال، وما الذي ينبغي ترميزه مقابل ما يجب نسيانه، وكيف يُنظَّمّت الحالة الداخلية، ومتى يكون التحكم في الاندفاع أو الثبات الزمني مفيدًا.
بعبارة أخرى، تُنفِّذ المستقبلات الميتابوتروبية نوعًا من التحكم فوق-الذكي (wise metacontrol). ليست بيانات، بل معلمات! تعمل كمتغيرات ديناميكية تُعدِّل سلوك النظام. وتتيح للنظام أن يصبح حساسًا للمعنى الوظيفي للموقف (الجِدّة، الأهمية، المكافأة، أو التهديد) دون الحاجة إلى استجابات فورية.
بالعودة إلى الاستعارة الكروية، تقابل المستقبلات الميتابوتروبية تكتيكات الفريق: تحديد متى يهاجم ومتى يدافع، أي تحديد كيف تُلعب المباراة.
من منظور حاسوبي، تعمل هذه الآليات عبر حالات وسيطة. ليست ثنائية (نشطة/غير نشطة). يعمل النظام في ثلاثة أنماط: حالة مُثيرة، وحالة مُثبِّطة، وحالة وسيطة لا تنتج مخرجات فورية لكنها تُعدِّل ديناميكيات المستقبل.
عندما نتحدث عن الثلاثية في شبكات الدماغ البيولوجية، فنحن لا نشير إلى تجريد رياضي أو حساب، بل إلى وصف وظيفي حرفي لكيف يحافظ الدماغ على التوازن عبر الزمن.
لهذا السبب، لا يدرس علم الأعصاب الحاسوبي في المقام الأول خرائط الإدخال–الإخراج، بل يدرس كيفية إعادة تنظيم الحالات بشكل مستمر. هذه الحالات تنبؤية بطبيعتها بشكل أساسي (Friston, 2010; Deco et al., 2009).
تقوم نماذج LLM بحسابات ثنائية.
في نماذج اللغات الكبيرة، لا معنى لمفهوم الثلاثية. فالتعلم قائم أساسًا على الانتشار العكسي للأخطاء (error backpropagation). أي أنه بمجرد معرفة مقدار الخطأ مقارنة بالبيانات المتوقعة، تقوم خوارزمية تحسين بضبط المعلمات بإشارة خارجية.
كيف يعمل ذلك؟ ينتج النموذج مخرجًا، مثل التنبؤ بالكلمة التالية الأكثر احتمالًا: “باريس هي عاصمة …”. إذا كانت الاستجابة “فنلندا”، فيتم مقارنتها بالكلمة الصحيحة من مجموعة التدريب (فرنسا). ومن هذه المقارنة، يُحسب خطأ رقمي. يقيس هذا الخطأ مدى ابتعاد التنبؤ عن القيمة المتوقعة. ثم يُحوَّل الخطأ إلى تدرّج (gradient)، أي إشارة رياضية تحدد في أي اتجاه وبكم ينبغي تعديل معلمات النموذج لتقليل الخطأ. يتم تحديث الأوزان للخلف فقط بعد أن يكون الناتج قد أُنتج وتم تقييمه.
يُحسب الخطأ لاحقًا (a posteriori)، ويتم تعديل الأوزان بحيث يصبح الرد الصحيح هو “فرنسا”، ثم يستأنف النظام التشغيل كما لو لم يحدث شيء.
في نماذج اللغات الكبيرة، يكون الفصل بين الديناميكيات والتعلم واضحًا بشكل خاص. أثناء الاستدلال (inference)، تبقى المعلمات ثابتة؛ لا يوجد لدونة عبر الإنترنت، ولا توجد تعوّد (habituation)، ولا إجهاد (fatigue)، ولا تكيف يعتمد على الزمن. لا يتغير النظام بمجرد كونه نشطًا.
في استعارة كرة القدم، تشبه نماذج LLM مدربًا يراجع الأخطاء بعد المباراة ويضبط التكتيكات للمباراة التالية. لكن خلال المباراة نفسها، يلعب الفريق التسعين دقيقة كاملة دون أي إمكانية لتعديل تقني أو تكتيكي!
هناك استراتيجية قبل المباراة وتصحيح بعد المباراة، لكن لا توجد ديناميكية أثناء اللعب!
لذلك فإن نماذج LLM ليست ثلاثية (ternary) بالمعنى الوظيفي. إنها مصفوفات من “الانتباه” (المحولات) تم تدريبها بشكل غير متصل (Vaswani et al., 2017). وليست هذه قيودًا كمية، بل اختلافًا في الوجود (ontological difference).
ديناميكيات ثلاثية Neuraxon وAigarth
يُقدِّم Neuraxon إطارًا مختلفًا جوهريًا. وحدته الأساسية ليست دالة إدخال–إخراج، كما في نماذج LLM، بل حالة داخلية مستمرة تتطور مع مرور الوقت. في Neuraxon، يُمثَّل الإثارة بـ +1، ويُمثَّل التثبيط بـ −1، وبين هاتين الحالتين توجد منطقة محايدة ممثلة بـ 0.
في كل لحظة، يدمج النظام تأثير المدخلات الحالية، والتاريخ القريب، والآليات الداخلية من أجل توليد مخرج ترنوميال (ثلاثي الحدود) منفصل (إثارة أو تثبيط أو حياد).
إن العلاقة بين الزمن والـ ternary (الثلاثي) محورية. إن الحالة المحايدة لا تمثل غياب الحوسبة أو الخمول، بل تمثل مرحلة دون العتبة تتراكم فيها المؤثرات دون إنتاج مخرجات فورية. وهي شبيهة بتحول تكتيكي ديناميكي في فريق كرة قدم، سواء أكان ذلك يؤدي إلى هدف لصالح الفريق أم ضده.
تعبِّر Aigarth عن المنطق نفسه على مستوى بنيوي. ليست الوحدات نفسها ثلاثية فحسب، بل يمكن للشبكة أن تنمو أو تعيد تنظيمها أو تنهار تبعًا لجدواها، مما يضيف بُعدًا تطوريًا يعزز التكيف المستمر. إن اقتران Neuraxon–Aigarth (ميكرو–ماكرو) يفضي إلى أوساط/أنسجة حاسوبية قادرة على البقاء نشطة (وحدات نسيج ذكاء)، وهو أمر يتعذر على البنى التي تعتمد حصريًا على backpropagation.
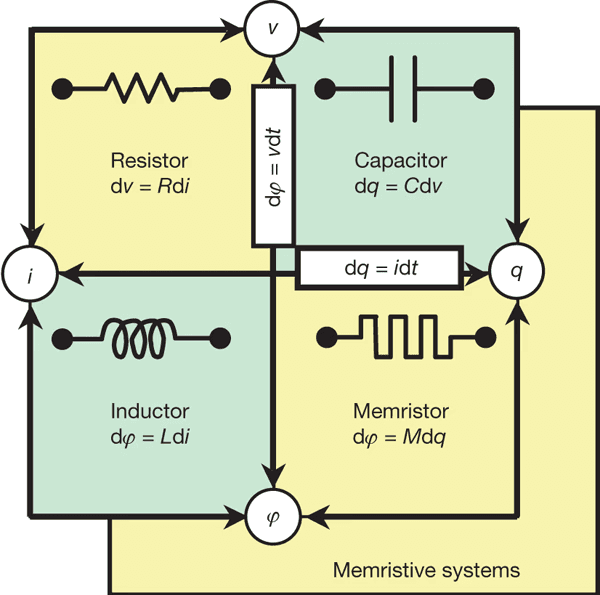
لا يمكن تجاهل سؤال العتاد. في الوقت الراهن، لا يوجد عتاد ثلاثي عام الاستخدام، لكن توجد خطوط بحث نشطة في منطق الثلاثية، بما في ذلك الميمريستور متعدد القيم والحوسبة العصبية الشكلية القائمة على الأجهزة المقاومة أو الأجهزة الدوّارة/السبينية (Yang et al., 2013; Indiveri & Liu, 2015). تهدف هذه المقاربات إلى تقليل استهلاك الطاقة، والأهم إلى تحقيق حوسبة ثلاثية متوافقة مع الديناميكيات الفيزيائية والحية والمستمرة.
هل من المنطقي أن تكون البنية ثلاثية حتى بدون عتاد ثلاثي مخصص؟ رغم هذا القيد، فإنها منطقية، لأن البنية تسبق الوسيط المادي. ومن خلال تصميم أنظمة ثلاثية، نكشف عجز المنطق الثنائي عن تمثيل عالم ديناميكي. وفي الوقت نفسه، يمكن لبنى ثلاثية مثل Neuraxon–Aigarth أن تحقق تحسينات على عتاد ثنائي قائم بالفعل عبر تقليل النشاط غير الضروري.
المراجع
ديكو، ج.، جيرسا، في. ك.، روبنسون، بي. إيه.، بريكسبيير، إم.، & فريستون، ك. ج. (2009). الدماغ الديناميكي: من عصبونات النبضات إلى الكتل العصبية والحُقول القشرية. PLoS Computational Biology, 5(8), e1000092.
فريستون، ك. (2010). مبدأ الطاقة الحرة: هل هو نظرية موحِّدة للدماغ؟ Nature Reviews Neuroscience, 11(2), 127–138.
إنديڤيري، جي.، & ليو، س.-سي. (2015). الذاكرة ومعالجة المعلومات في الأنظمة العصبية الشكلية. Proceedings of the IEEE, 103(8), 1379–1397.
نورتهوف، جي. (2018). الدماغ التلقائي: من مشكلة العقل–الجسد إلى علم الظواهر العصبية. مطبعة MIT.
فاسواني، أ.، شازير، ن.، بارمار، ن.، وآخرون (2017). الانتباه هو كل ما تحتاجه. Advances in Neural Information Processing Systems, 30.
يانغ، ج. ج.، سترُّوكوف، دي. بي.، & ستيوارت، دي. آر. (2013). أجهزة الميمريستور للحوسبة. Nature Nanotechnology, 8(1), 13–24.