

أكاديمية نيورّاكسون للذكاء · المجلد 12 · بواسطة الفريق العلمي الكيوبك
لا يمتلك الدماغ ساعة مركزية. بل يضم العديد من الساعات، موزعة في جميع أنحاء النسيج ومضبوطة على نطاقات تمتد من الميكروثانية إلى فصول السنة.
نعلم أن الذكاء لا يُحسب على خطوات بل في الزمن، حيث تعمل العصبونة كنظام ديناميكي: حالة تتغير باستمرار ولا تعيد الضبط أبداً. لكن ذلك لا يكفي لكي تعيش كل وحدة في زمن مستمر. يجب على الكائن الحي أن يقيس الفواصل الزمنية، ويتنبأ بما هو آتٍ، ويتعلم من الأسباب التي حدثت قبل ثوانٍ، وفي الوقت نفسه يبقى مستقراً لسنوات. هذه مسائل زمنية مختلفة، ولا يحلها الدماغ بالآلية نفسها.
على مدى عقود سعت سيكولوجيا الزمن إلى إيجاد ساعة داخلية واحدة: نوع من المذبذب (pacemaker) يطلق نبضات وعدّاد يجمعها. حقق هذا التصور نجاحًا وصفيًا، لكن علم الأعصاب استمر في العثور على شيء آخر. تُميّز الأدبيات اليوم بين النماذج المخصصة، التي تفترض دارة متخصصة لقياس الزمن، والنماذج الذاتية، حيث يُقرأ الزمن من التطور نفسه لنشاط العصبونات (Ivry & Schlerf، 2008). لا توجد ساعة توقيت واحدة. توجد آليات موزعة متخصصة بحسب المقياس والوظيفة: المخيخ للفواصل القصيرة والدقيقة، ودارات قشرية-مخططية (cortico-striatal) لفواصل من الثواني، والقشرة لدمج سلاسل طويلة (Merchant، Harrington & Meck، 2013؛ Paton & Buonomano، 2018).
من الميكروثانية إلى الفصول: الزمن الذي يعرفه الدماغ بالفعل وكيف يتعامل معه
يتولى الدماغ في الوقت نفسه إدارة أحداث تدوم أقل من طرفة عين ودورات تدوم شهورًا. لا تغطي أي آلة أخرى مثل هذا النطاق الواسع بالنسيج نفسه.
عند أسرع طرف توجد موضعة الأصوات. ضوضاء قادمة من اليسار تصل إلى الأذن اليسرى قبل اليمنى ببضعة عشرات أو مئات من الميكروثانية. تلتقط دارات جذع الدماغ هذا الفرق وتحوّله إلى اتجاه في الفضاء (Grothe، Pecka & McAlpine، 2010). لسنا واعين بالحساب؛ فنحن ببساطة نُميل رؤوسنا نحو الصوت. في مكان أعلى قليلًا، وعلى مقياس عشرات الميلي ثانية، توجد اللغة المنطوقة. ما يميّز "ba" عن "pa" هو، إلى حد كبير، مدى سرعة بدء اهتزاز الصوت بعد فتح الشفاه (زمن بدء نطق الصوت). اختلاف بضعة عشرات من الميلي ثانية يغيّر الحرف الساكن الذي نسمعه (Lisker & Abramson، 1964).
على مقياس الثواني تكاد كل الأشياء التي نقوم بها عمدًا تحدث: الإمساك بكرة وهي في الهواء، متابعة إيقاع أغنية، انتظار دورنا في محادثة، ملاحظة أن إشارة المرور تستغرق وقتًا أطول من المعتاد. هنا لا يكتفي الدماغ بالإدراك، بل يتوقع أيضًا. يعرف متى يجب أن يصل الشيء التالي ويُفاجأ إذا لم يصل.
تظهر تغيّرات أبطأ من حيث الدقائق والساعات، والتي لا نختبرها كأحداث بل كحالات. إذ يتوقف رائحةٌ قوية عن ملاحظتها بعد فترة: وهذا هو التعود. تتدهور الانتباهية بعد فترة من مهمةٍ مُستمرة. ولدى الكائن أيضًا إيقاعات فوق يومية (ألتردانية)، أي دورات أقصر من يوم وتكرر عدة مرات في أربعٍ وعشرين ساعة. الأكثر شهرة هو النوم: خلال الليل نبدّل بين مرحلتي النوم غير السريع (NREM) والسريع (REM) في دورات تقارب تسعين دقيقة. كما لا تُفرز هرمونات التوتر بشكلٍ متواصل أيضًا، بل على شكل نبضات تقريبًا كل ساعة، وتخدم هذه النبضية غرضًا: تستجيب الأنسجة بشكل مختلف لهرمونٍ يصل على شكل نبضات مقارنةً بالكمية نفسها المُعطاة بشكلٍ ثابت (لايتمن & كونيواي كامبل، 2010 - https://doi.org/10.1038/nrn2914).
يستحق النوم ذكرًا خاصًا لأنه يجمع بين ساعتين. إحداهما ضغط نوم يتراكم مع ساعات اليقظة ويتبدد أثناء النوم. والأخرى إيقاع مدته نحو 24 ساعة يفتح ويغلق نافذة النوم بغض النظر عن مدى تعبنا. أثناء اليقظة تميل المشابك إلى التقوية إجمالًا، وخلال النوم يُعاد ضبطها إلى الأسفل، ما يحافظ على ما هو ذي صلة ويعيد للدماغ مساحة ليتعلم في اليوم التالي (Tononi & Cirelli، 2014 - https://doi.org/10.1016/j.neuron.2013.12.025).
ذلك الإيقاع الذي يستمر أربعًا وعشرين ساعة هو الإيقاع اليومي (circadian)، من اللاتينية circa diem أي “حوْل يوم”. الساعة الرئيسية موجودة في النواة فوق التصالبة (suprachiasmatic nucleus) في الوطاء، وهي مجموعة صغيرة من العصبونات (حوالي عشرين ألفًا لدى القوارض، مع احتساب الجانبين) تقع مباشرة فوق تقاطع الأعصاب البصرية (Abrahamson & Moore، 2001). داخل كل خلية منها، تستغرق حلقة من الجينات والبروتينات التي تنشّط وتثبّط بعضها بعضًا نحو أربع وعشرين ساعة لإكمال دورة (Takahashi، 2017). يضبط الضوء ذلك الوقت من خلال خلايا في شبكية العين تقيس كمية الضوء في البيئة (Hattar وآخرون، 2002). فرق التوقيت (Jet lag) هو التجربة المباشرة لهذه الساعة: حيث تغيّر العالم وقتَه فجأة، وتأخذ الساعة الداخلية أيامًا لإعادة الضبط.
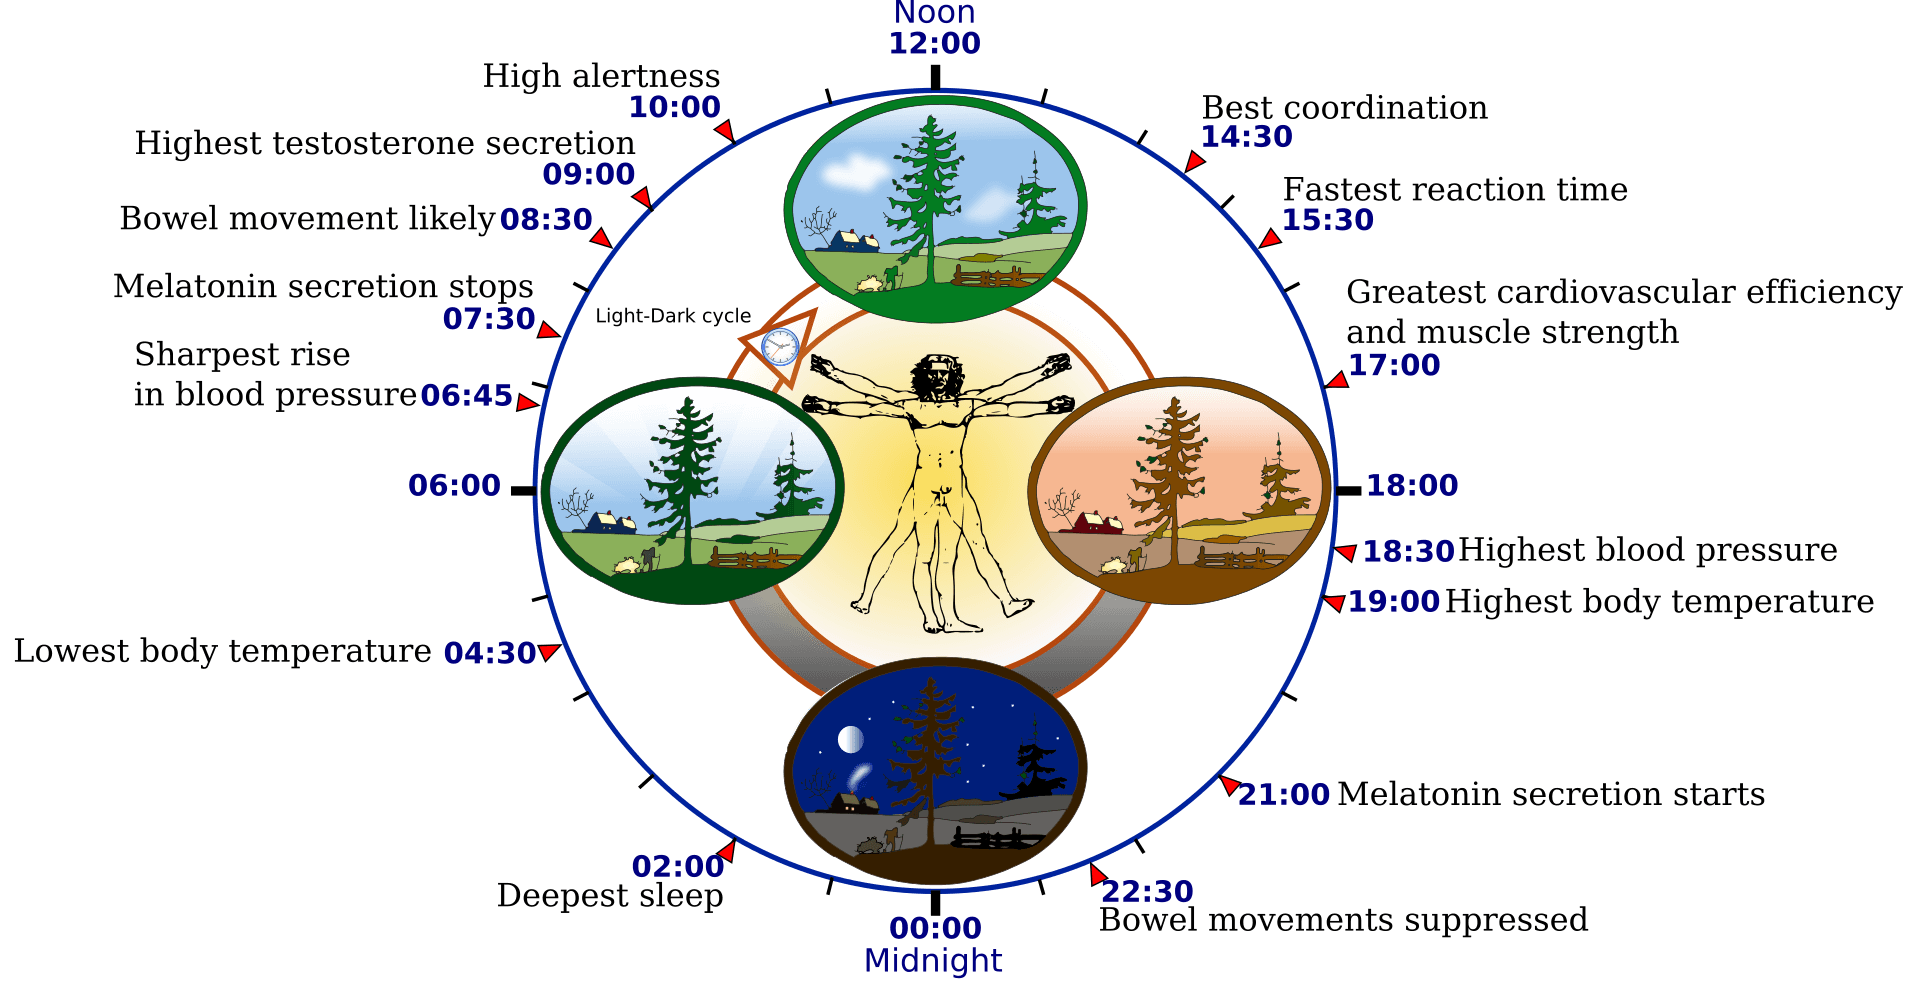
الشكل 1. الإيقاع اليومي عبر يوم مدته 24 ساعة. ساعة رئيسية في النواة فوق التصالبة (suprachiasmatic nucleus) تُزامن النوم وإطلاق الهرمونات واليقظة مع دورة الضوء-الظلام. الصورة: "الساعة البيولوجية (بشريّة)"، ويكيميديا كومنز (ملكية عامة).
فوق اليومية تأتي الإيقاعات تحت اليومية (infradian)، أي أطول من 24 ساعة. في أنثى الجرذ، تنخفض كثافة الزوائد الشجرية في الحُصين، وهي النتوءات الصغيرة التي تتشكل فيها المشابك، بنحو 30% خلال أربع وعشرين ساعة فقط ضمن دورة إستروجينية تستمر أربعة أو خمسة أيام تتبع مستويات الإسترياديول (Woolley & McEwen، 1992). تغيّر توصيلات بنية مرتبطة بالذاكرة إيقاعيا.
بعد ذلك تأتي الإيقاعات الموسمية: مدة إفراز الميلاتونين ليلًا تُشفّر طول الليل، وبذلك تعرف كثير من الثدييات ما هي السنة (Wehr، 2001).
يبقى مقياس عمر كامل. أثناء التطور توجد فترات حرجة لا يمكن فيها تنظيم بعض الدارات إلا ضمن نافذة زمنية محددة؛ فإذا جاءت الخبرة متأخرة، لا تتشكل الدارة بالطريقة نفسها (Hensch، 2005). لا يقيس الدماغ الزمن فقط. بل يُبنى في الزمن.
تتعايش كل هذه المقاييس في العضو نفسه وتؤثر بعضها في بعض. يفتح المنظم الدوري نافذة النوم، يعيد النوم ضبط المشابك، وتعدّل الهرمونات التوصيلات، وكل ذلك يهيئ ما يُتعلّم في تلك الثانية المعينة. إننا نريد محاكاة هذا التعايش قدر الإمكان.
تسلسل هرمي من النوافذ الزمنية في القشرة
الدليل الأول على هذا البناء هو أن مناطق قشرية مختلفة لا “تتذكر” لنفس مدة الزمن. قياس موري وزملاؤه (https://doi.org/10.1038/nn.3862) مقدار الوقت الذي يستغرقه تلاشي الارتباط الذاتي للنشاط العفوي للعصبونات في مناطق مختلفة من قرد المكاك. تمتلك مناطق الحس ثوابت زمنية قصيرة: تستجيب بسرعة وتنسى بسرعة. تمتلك القشرة أمام الجبهية ومناطق الترابط ثوابت أطول بكثير: فهي تدمج المعلومات على مدى أطول. القشرة مرتبة كتسلسل هرمي من النوافذ الزمنية.
في البشر لوحظ شيء مماثل مع محفزات سردية. عرض هاسون وزملاؤه (https://doi.org/10.1523/JNEUROSCI.5487-07.2008) أفلامًا مُعَلَّمة بشكل عشوائي على مقاييس مختلفة، من أجزاء مدتها ثوانٍ إلى مشاهد كاملة. استجابت مناطق الحس الأساسية بالطريقة نفسها بغض النظر عن عملية التشويش. استجابت المناطق الأعلى رتبة بدقة فقط عندما تمت المحافظة على البنية على المقاييس الطويلة. لكل منطقة “نافذة تكامل زمنية” خاصة بها. أعطى كيبيل وداونيزاو وفرستون (https://doi.org/10.1371/journal.pcbi.1000209) هذا الرصد قراءة حاسوبية: إذا كانت البيئة تولّد أسبابًا تُغيّر بسرعة مختلفة، فإن الدماغ الذي يريد التنبؤ بها يحتاج إلى تسلسل هرمي من المقاييس الزمنية يعكس تلك البنية.
هناك أيضًا مقياس مُمتاز للتجربة. جمع بوبل (https://doi.org/10.1016/S1364-6613(97)01008-5) أدلة على أننا نُدمج الأحداث في نوافذ تقارب ثانيتين أو ثلاث ثوانٍ، وهي “الآن” الوظيفي الذي يجمع ما نُدرِكه كتزامن أو استمرارية. ليس رقمًا سحريًا. إنه نتيجة عمل الجهاز العصبي مع عدة ثوابت زمنية متداخلة.
الزمن بوصفه حالة: ساعات سكانية وخلايا زمنية
إذا لم يكن هناك ساعة مركزية، فكيف تعرف الشبكة مقدار الوقت الذي انقضى؟ الإجابة الأكثر أناقة هي أن الزمن مُشفّر في الحالة نفسها للشبكة. صاغ بوونو مانو ومااس (https://doi.org/10.1038/nrn2558) ذلك كـ “حساب معتمد على الحالة”، حيث تتلقى شبكة عودية منبّهًا يتتبّع مسارًا من النشاط لا يتكرر. وفي كل لحظة تكون بنيته مختلفة. يكفي القارئ الذي يتعلم التعرّف على تلك البنية ليعرف مقدار الوقت الذي مرّ منذ المنبّه.
يقدم الحُصين نسخة لافتة من هذه الفكرة. أثناء الفترات الفارغة في مهمة ما، تُطلق بعض العصبونات النار في لحظات محددة من الفاصل الزمني، بالتتابع، كأنها تُعلِّم الثواني المتتالية. وقد سُمّيت خلايا زمنية (MacDonald وآخرون، 2011؛ Eichenbaum، 2014). وتقدم القشرة المعوية الجانبية قطعة أخرى: تجمعات تُغيّر نشاطها تدريجيًا مع الخبرة، بحيث يمكن فك ترميز الزمن المنقضي من التغير التراكمي في نشاط المجموعة (Tsao وآخرون، 2018). وفي كلتا الحالتين لا يُقاس الزمن بالنبضات، بل بتغيرات الحالة.
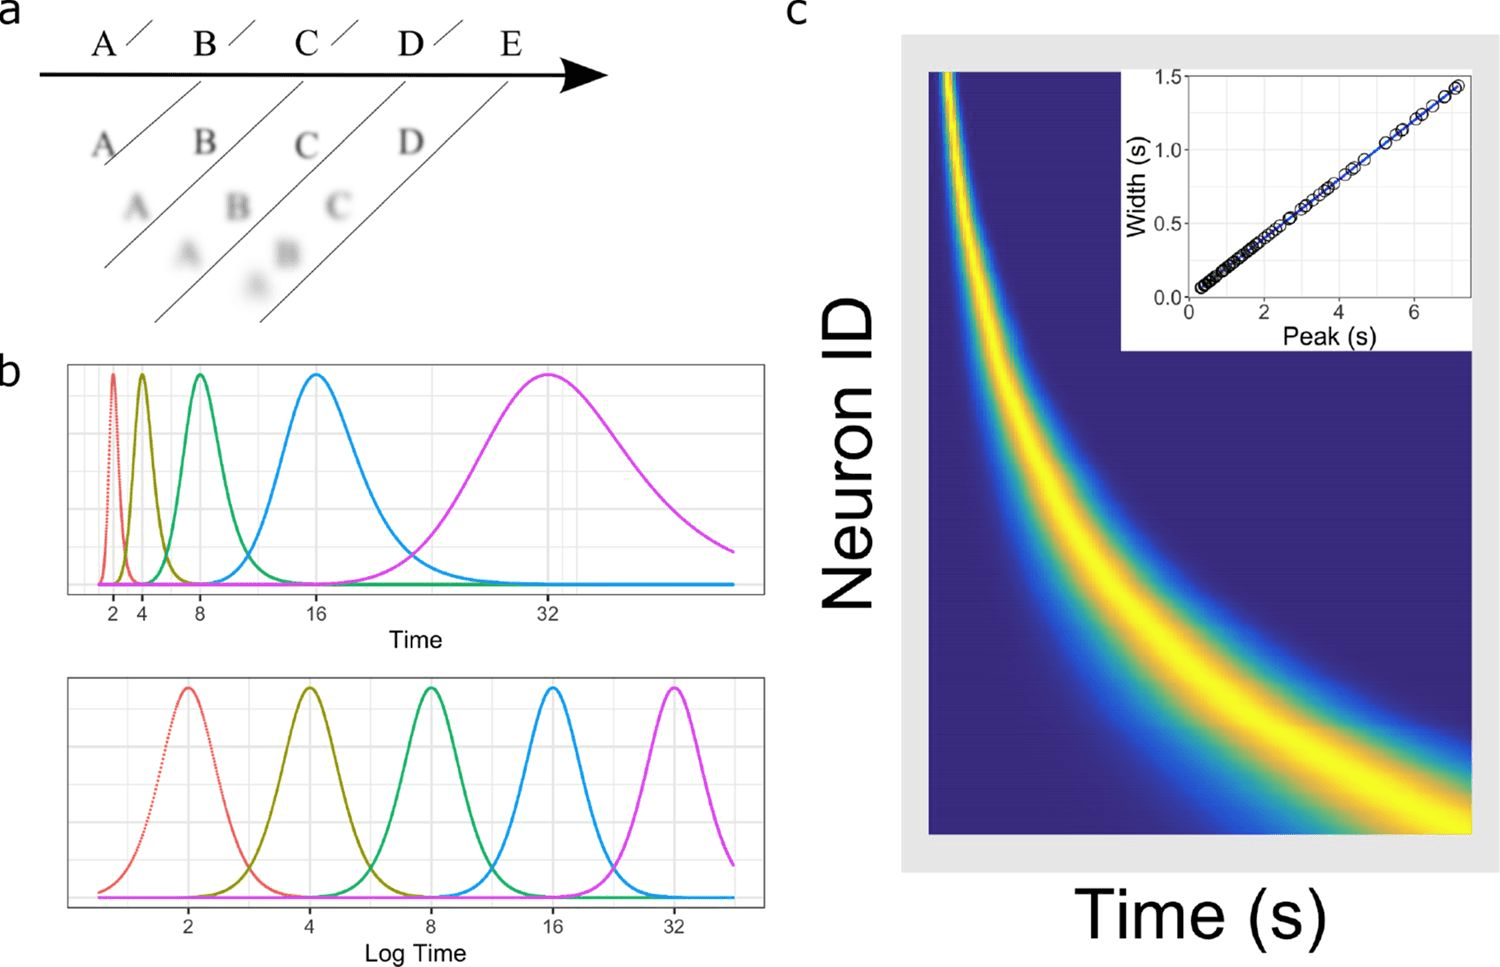
الشكل 2. “خلايا الزمن” تُقسِّم فاصلًا: تُطلق عصبونات الحُصين الفردية النار في لحظات متعاقبة، لذا يُقرأ الزمن المنقضي من تسلسل الخلايا النشطة بدلاً من ساعة مركزية. الصورة: Cao، Bladon وآخرون (2022)، eLife 75353، الشكل 1، CC BY 4.0.
التعلّم في الزمن: نوافذ اللدونة المشبكية
تمثيل الزمن شيء. التعلم في الزمن شيء آخر. نادرًا ما يقدّم العالم العاقبة في نفس الميلي ثانية التي حدث فيها السبب. يحل الدماغ هذه المشكلة عبر عدة نوافذ لدونة متداخلة.
الأقصر هو اللدونة المعتمدة على توقيت النبضات (STDP، إحدى آليات Neuraxon). إذا أطلق عصبون قبل مشبكي النار قبل العصبون بعد مشبكي ببضعة ميلي ثوانٍ، فإن المشبك يقوى؛ وإذا أطلق بعده، فإنه يضعف. النافذة المفيدة هي بضعة عشرات من الميلي ثانية (Bi & Poo، 1998). إنها كاشف للسببية المحلية، شديد الدقة وشديد القِصر.
تلك النافذة ليست كافية لربط فعلٍ بمكافأة تصل بعد ثانية لاحقة. هذا ما تكون له أثَر أهلية: تزامن النشاط يترك علامةً عابرة على المشبك، وتتحول تلك العلامة إلى تغيّر في الوزن إذا وصل إشارة تعديل عصبي أثناء استمرارها. في الزوائد الشجرية لعصبونات المخطط (السترياتوم) تُقوّي الدوبامين المشابك فقط إذا وصل بين نحو 0.3 و2 ثانية بعد النشاط (Yagishita وآخرون، 2014). يضيف الحُصين لدونةً مشبكية على المقياس الزمني السلوكي، قادرة على ربط مدخلات تفصل بينها عدة ثوانٍ وعلى إنشاء حقل مكان في تجربة واحدة (Bittner وآخرون، 2017).
فوق ذلك توجد مقاييس أبطأ. يعمل الترسيخ واللدونة البنيوية خلال ساعات أو أيام، وما يُرسَّخ لا يعتمد بعد ذلك على نشاط اللحظة.
الاستقرار دون تجميد: الثبات على مقاييس متعددة
شبكة تتعلم وفق قواعد هيبّية غير مستقرة بطبيعتها. إذا كان ما يشتعل معًا يزداد تقويةً، فإن ما تمت تقويته يشتعل أكثر ويُقوَّى أكثر. دون وزنٍ مضاد، تُشبِع الشبكة أو تخفت تمامًا.
للدماغ ذلك الوزن المضاد. وصف تورّيجانيانو (2008) ضبط التحجيم المشبكي: عندما يبقى العصبون شديد النشاط لساعات، فإنه يقلل بشكلٍ متناسب قوة جميع مشابكه، ويزيدها إذا ظل صامتًا بشكلٍ مفرط. تتكيف القابلية الذاتية للإثارة بطريقة مشابهة (Desai, Rutherford & Turrigiano, 1999). في الجسم الحي، يعيد هذا التعاقب البطيء النشاط القشري إلى نقطة ضبطه خلال أيام، وبطريقة تعتمد على حالات اليقظة والنوم (Hengen وآخرون، 2016).
لكن توجد صعوبة. اللدونة الهيبّية تعمل في ثوانٍ، والثبات المشبكي في ساعات. بيّن زِنكِه، غيرستنر، وغانغولي (2017) أن منظّمًا بطيئًا من هذا النوع لا يستطيع، بمفرده، كبح هذا الاضطراب السريع. الاستنتاج إذن هو أنه يجب أن توجد آليات تعويض سريعة تعمل بسرعة قريبة جدًا من سرعة التعلّم، وأن الثبات البطيء يتكفّل بشيء آخر: تصحيح الانجراف طويل الأمد. لا توفر الاستقرارية منظمًا حراريًا؛ بل توفرها سلسلة من المنظِّمات، كل واحد ضمن مقياسه الخاص.
تصل نظرية الذاكرة إلى نتيجة موازية. بيّنت بينا وفيُسي (2016) أن المشابك ذات مقياس زمني واحد، إذا كانت تتغير بسرعة، تتعلم جيدًا لكن تنسى بسرعة؛ وإذا كانت تتغير ببطء، فإنها تحافظ لكن لا تتعلم تقريبًا. المشابك ذات متغيرات داخلية مقترنة بمقاييس مختلفة تفلت من هذا المأزق وتضاعف سعة الذاكرة. التنظيم متعدد المقاييس هو الحل لمشكلة حسابية.
ماذا يفعل Transformer بالزمن؟
ضمن هذا الإطار الكامل يمكننا النظر إلى البنية التي تهيمن على الذكاء الاصطناعي الحالي. يعالج Transformer تسلسلاً من أجزاء النص (رموز). ولكي يعرف النموذج الترتيب الذي تظهر به، تُضاف ترميز وضعي إلى كل رمز، حيث يشير متجه إلى ما إذا كان هو الأول أو الثاني أو الألف (Vaswani وآخرون، 2017). ثم تقارن آلية الانتباه كل الرموز مع كل الرموز مرة واحدة.
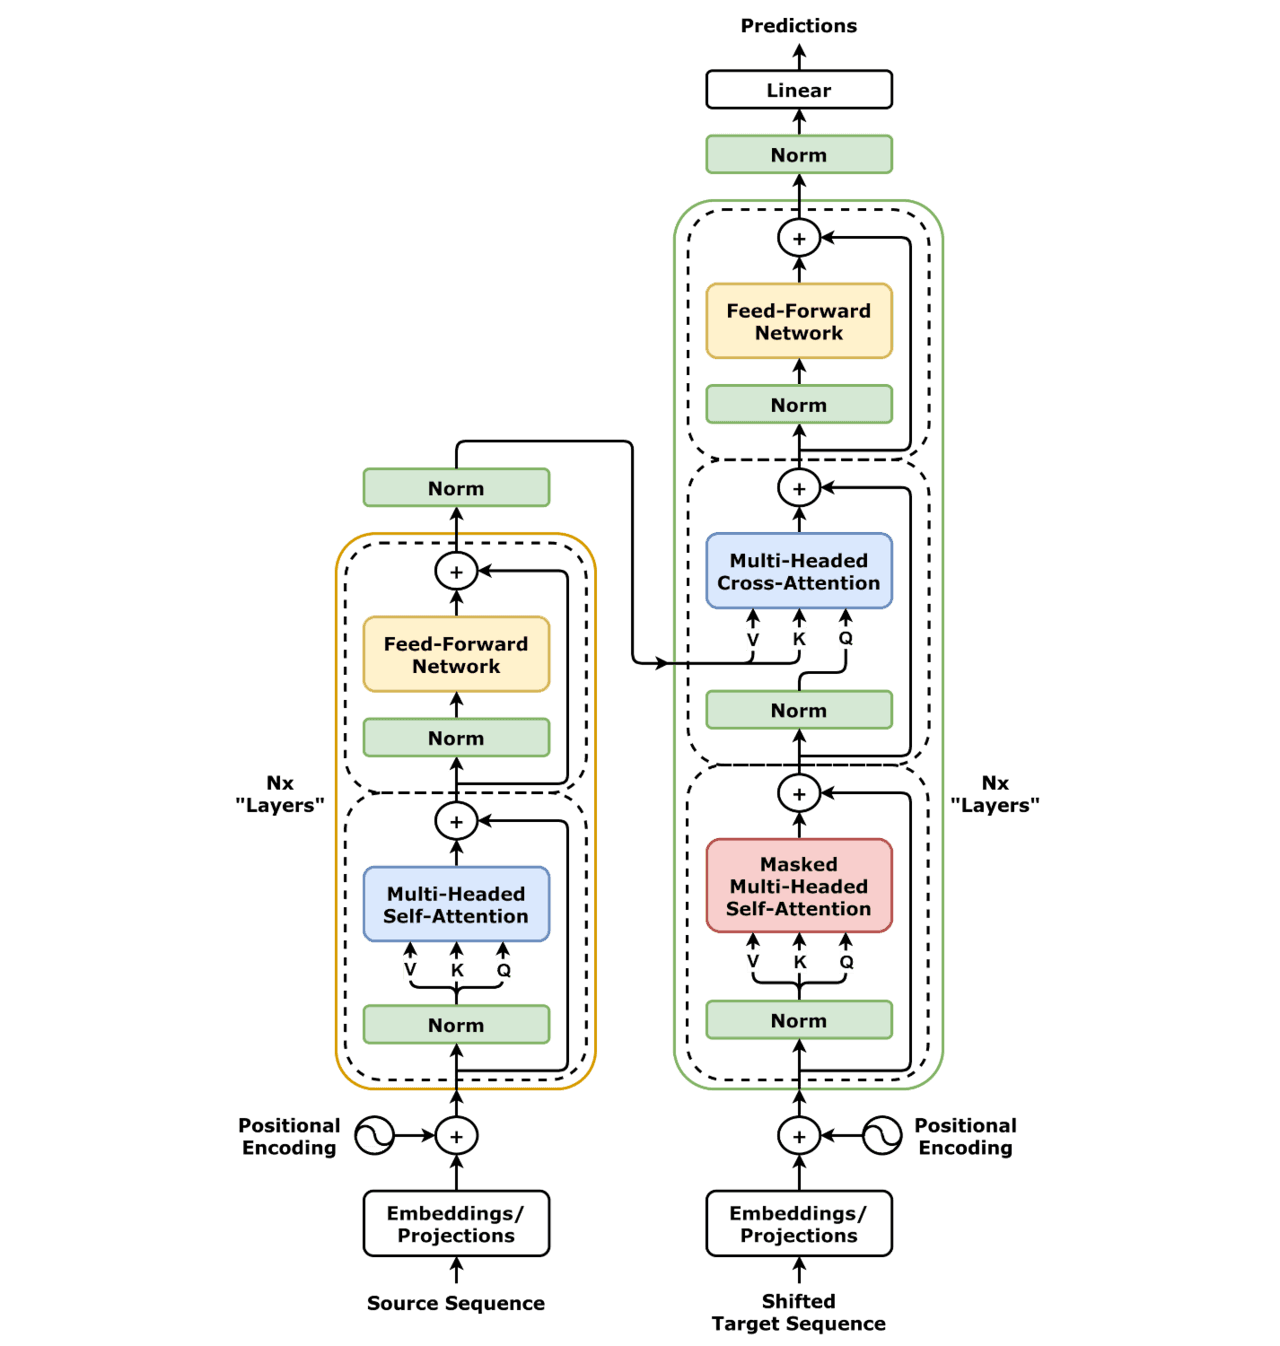
الشكل 3. بنية Transformer. تُقدَّم الرتبة مرة واحدة، كترميز وضعي مضاف إلى كل رمز؛ ثم تقارن آلية الانتباه الذاتي كل الرموز مع كل الرموز في آن واحد، لذلك يعامل النموذج موضع التسلسل كمؤشر بدلًا من “العيش عبر الزمن”. الصورة: "Transformer, full architecture"، ويكيميديا كومنز (CC BY-SA 4.0).
النتيجة عميقة. بالنسبة لـ Transformer، الزمن هو مؤشر (index). لا توجد مدة؛ توجد فقط ترتيب. إن صمتًا مدته ثانية وصمتًا مدته ساعة لا يمكن تمييزهما إذا لم ينتجا رموزًا مختلفة. علاوة على ذلك، فإن السياق بالكامل متاح في آن واحد. لا “تعيش” البنية عبر التسلسل؛ بل تتأمله ككل، مثل خريطة مبسوطة على طاولة. وبعبارات علم الأعصاب، فقد حوّل الزمن إلى مساحة.
كما لا توجد مقاييس زمن تعلم أثناء الاستخدام. الأوزان ثابتة أثناء التدريب وتبقى مجمّدة. ما “يتذكره” النموذج داخل محادثة يكمن في نافذة سياقه، وهي ذاكرة عاملة خارجية ومحدودة. ما يعرفه عن العالم ينتهي عند تاريخ قطعه. بين مقياس نافذة السياق ومقياس إعادة التدريب، والذي يُقاس بالأشهر، لا يوجد شيء.
أربع قيود على Transformers ناتجة عن ذلك الاختيار
الحد الأول هو عدم الحساسية لمدة الاستمرار. تعتمد كثير من ظواهر العالم الفيزيائي والاجتماعي على مدة استمرار شيء ما، لا فقط على ما يحدث قبله. تُظهر سلاسل البيانات الزمنية المطبّقة على المحوّلات كلفة ذلك الاختيار. يتفوق نموذج خطي بسيط على عدة بنى Transformer متخصصة في التنبؤ بالسلاسل الطويلة، جزئيًا لأن الانتباه، بوصفه غير حساس للترتيب (permutation-invariant)، يفقد معلومات الترتيب الزمني الدقيق التي لا يعيد الترميز الموضعي استعادتها بالكامل (Zeng وآخرون، 2023).
الثاني هو ذاكرة مسطحة. نافذة السياق لا تحتوي على تسلسل هرمي للمقاييس: كل ما يتسع يكون حاضرًا على قدم المساواة، وكل ما لا يتسع يختفي. ولا حتى داخل النافذة يكون الوصول متجانسًا. تسترجع النماذج المعلومات الواقعة في منتصف سياقات طويلة أسوأ من المعلومات في البداية أو النهاية (Liu وآخرون، 2024). لا يوجد ما يعادل النوافذ المتداخلة التي وصفها موري وهاسون.
الثالث هو الفصل الصلب بين التعلّم والعمل. لا يتعلم Transformer أثناء عمله. إذا أُعيد تدريبه ببيانات جديدة دون احتياطات، فإنه يميل إلى الكتابة فوق ما جاء قبل ذلك، وهي ظاهرة معروفة منذ عقود باسم التداخل الكارثي (McCloskey & Cohen، 1989). وهذا هو المأزق أحادي المقياس بالضبط: حيث إن عدم وجود متغيرات بطيئة لحماية ما تم ترسيخه يجعل السريع يمحو القديم.
الرابع هو ثبات مُستورَد. لا ينظم الشبكة نفسه. يعتمد استقراره على تطبيع رياضي ثابت، وعلى جداول معدل التعلم المصممة من المهندسين، وعلى عملية تدريب تنتهي. يعمل بدقة لأنه يتوقف عن التغير. لا يستطيع كائن حي أن يتحمل هذا الحل.
لا ينفي هذا كله قوة Transformers. بل يفسر لماذا يؤدون أداءً ممتازًا في المهام التي يكون فيها العالم مناسبًا للنص، وبشكل ضعيف عندما يتعين عليك التصرف والانتظار والتوقع وتصحيح المسار في بيئة تظل في الحركة. توجد بدائل داخل التعلم العميق ذاته، مثل شبكات الثوابت الزمنية السائلة (Hasani وآخرون، 2021) أو نماذج فضاء الحالة. إنها تقدم حقيقي، وتؤكد أن الزمن يجب إدخاله في الديناميات.
كيف يحاول Neuraxon 3.0 تحقيق ذلك: الثبات الزمني متعدد المقاييس (MSTH)
يبدأ Neuraxon من فرضية معاكسة تمامًا لفرضية Transformer. الزمن ليس مُشفّرًا كموضع؛ بل هو المتغير الذي تتطور عليه حالة كل وحدة. قدّم Neuraxon 2.0 معالجةً بالزمن المستمر مسبقًا، ومشابك ذات مكوّنات سريعة وبطيئة، وآلية ChronoPlasticity تسمح لكل مشبك بضبط أفق ذاكرته. أما Neuraxon 3.0، الجاري تطويره، فيُعيد تنظيم هذه الأجزاء حول تسلسل هرمي للمقاييس الذي وصفناه.
القرار الأول هو فصل ما يفصله الدماغ. أحد الأمور هو التيار المشبكي، الذي يرتفع ويتبدد خلال أجزاء من المللي ثانية وفق حركيات المستقبل. والآخر هو الوزن، الذي يستمر. إن خلط المتغيرين معًا يجعل الذاكرة تعتمد على ضجيج اللحظة (Destexhe, Mainen & Sejnowski, 1994؛ Tsodyks & Markram, 1997).
الثاني هو تكديس نوافذ اللدونة. على مقياس الميلي ثانية، يعمل قانون يعتمد على ترتيب النبضات. وعلى مقياس الثواني، توجد أثَر أهلية تنتظر إشارة تعديل عصبي، بما يتماشى مع الدوبامين الرجعي الموصوف تجريبيًا (Yagishita وآخرون، 2014؛ Brzosko، Schultz & Paulsen، 2015)، ولادونة على المقياس الزمني السلوكي مستوحاة من الحُصين. وعلى المقاييس الأبطأ، تعمل بوابات ما بعد اللدونة (metaplastic gates) ومجالات الخلايا النجمية التي تقرر مقدار تغيّر مجموعة من المشابك.
الـثالث هو الثبات متعدد المقاييس، والذي نسميه في Neuraxon MSTH (الثبات الزمني متعدد المقاييس). بدلًا من منظم حراري واحد، توجد أربع حلقات تنظيم متناسقة، من حلقة فائقة السرعة تخمد دفعات النشاط إلى حلقة بطيئة تصحح الانجراف طويل الأمد. إنها الترجمة الحاسوبية لحجة زِنكِه وغِرستنر وغانغولي (2017): المنظمات السريعة تحتوي لا استقرار هيبّية، والمنظمات البطيئة تحافظ على نقطة الضبط دون تجميد التعلّم. الحرج، وهو النظام الذي لا يموت فيه النشاط ولا يندفع بعيدًا، يُقاس بوصفه قابلًا للقياس كخاصية من خصائص النظام (Wilting & Priesemann، 2018).
إن Neuraxon 3.0 هو اليوم بنية قيد التصميم، وستخضع مساهمة MSTH لتجارب محددة في أنظمة ذات أفق طويل قبل الادعاء بأي شيء حول فعاليتها. كما أنه لا يدمج بعد مرحلة ترسيخ (consolidation) خارجية مكافئة للنوم، وهو ما تشير إليه النظرة العامة السابقة بوصفه ضروريًا، ونعتبره أحد المهام الرئيسية المعلقة.
لماذا يهم الزمن بالنسبة لـ Qubic
الذكاء الذي نبحث عنه لا يجيب عن أسئلة مغلقة. إنه يعمل في بيئات تتغير بينما يعمل. تُظهر الألعاب التفاعلية ARC-AGI-3 ذلك جيدًا: فهي لا تقدم بيانًا للمشكلة، بل عالمًا تُكتشف قواعده باللعب، خطوةً بخطوة. النظام الذي لا يميّز بين ما حدث للتو وما حدث قبل خمسين خطوة، والذي لا يستطيع ربط فعلٍ بعاقبته المتأخرة، والذي لا يتعلم أثناء اللعب، يكون في وضع بنيوي غير ملائم.
ولهذا لا يكون الزمن في Neuraxon مجرد تفصيل تنفيذ. إنه الأرض التي يُقرر عليها ما إذا كانت البنية قادرة على التكيف. ولهذا أيضًا من المنطقي تطويره على شبكة مثل Qubic التي تعمل باستمرار وبحالة، حيث يمكن للنظام أن يستمر ويتغير وينظم نفسه دون أن يعيد أحد ضبطه. استغرق الدماغ مئات الملايين من السنين ليتعلم إدارة الزمن على عدة مقاييس في آن واحد. نحن نحاول حساب هذه الخاصية الفريدة.
المراجع
إبراهامسون، إي. إي، و مور، آر. واي (2001). النواة فوق التصالبة في الفأر: التعصيب الشبكي والتنظيم الذاتي والإسقاطات الصادرة. أبحاث الدماغ، 916(1–2)، 172–191. https://doi.org/10.1016/S0006-8993(01)02890-6
بينّا، إم. كي، و فيوسي، إس (2016). مبادئ حسابية لترسيخ الذاكرة المشبكية. علم الأعصاب الطبيعي، 19(12)، 1697–1706. https://doi.org/10.1038/nn.4401
بي، جي. كيو، و بو، إم. إم (1998). تعديلات مشبكية في عصبونات الحُصين المزروعة في المختبر: الاعتماد على توقيت النبضات وقوة المشبك ونوع الخلية بعد المشبك. مجلة علم الأعصاب، 18(24)، 10464–10472. https://doi.org/10.1523/JNEUROSCI.18-24-10464.1998
بيتِنر، كي. سي، ميلستين، إيه. دي، غرينبيرغر، سي، روماني، إس، و ماجي، جي. سي (2017). اللدونة المشبكية على المقياس الزمني السلوكي تكمن وراء حقول مكانية في CA1. مجلة العلوم، 357(6355)، 1033–1036. https://doi.org/10.1126/science.aan3846
بوربِلي، آ. آ (1982). نموذج عمليّ ذي مرحلتين لتنظيم النوم. علم الأعصاب البشري، 1(3)، 195–204.
بُرزوسكو، زي، شولتز، دبليو، و بولسن، أ. (2015). تعديل رجعي لتوقيت اللدونة المعتمدة على توقيت النبض بواسطة الدوبامين. eLife، 4، e09685. https://doi.org/10.7554/eLife.09685
بوونو مانو، دي. في، و ماس، و (2009). حسابات معتمدة على الحالة: المعالجة الزمان-مكانيّة في الشبكات القشرية. مراجعات طبيعة لعلم الأعصاب، 10(2)، 113–125. https://doi.org/10.1038/nrn2558
ديزاي، إن. إس، رذرفورد، إل. سي، و تورّيجانيانو، جي. جي (1999). اللدونة في القابلية الذاتية للإثارة لعصبونات هرمية قشرية. علم الأعصاب الطبيعي، 2(6)، 515–520. https://doi.org/10.1038/9165
ديستكسي، آ، ماينن، زي. إف، و سيجنوفسكي، تي. جي (1994). توليف نماذج للأغشية القابلة للإثارة، والنقل المشبكي، والتعديل العصبي باستخدام صياغة حركية مشتركة. مجلة علم الأعصاب الحاسوبي، 1(3)، 195–230. https://doi.org/10.1007/BF00961734
إيخنباوم، هـ (2014). خلايا الزمن في الحُصين: بُعد جديد لخرائط الذاكرات. مراجعات طبيعة لعلم الأعصاب، 15(11)، 732–744. https://doi.org/10.1038/nrn3827
غروثِه، ب، بيكا، م، و مكالپين، د (2010). آليات تحديد مكان الصوت لدى الثدييات. المراجعات الفسيولوجية، 90(3)، 983–1012. https://doi.org/10.1152/physrev.00026.2009
هاساني، ر، ليختنر، م، أميني، أ، روس، د، و غروسو، ر (2021). شبكات ثابتة زمنية سائلة. وقائع مؤتمر AAAI للذكاء الاصطناعي، 35(9)، 7657–7666. https://doi.org/10.1609/aaai.v35i9.16936
هاسون، يو، يانغ، إي، فالينز، آي، هيغير، دي. جي، و روبن، إن (2008). تسلسل هرمي لنوافذ استقبال زمنية في القشرة الدماغية البشرية. مجلة علم الأعصاب، 28(10)، 2539–2550. https://doi.org/10.1523/JNEUROSCI.5487-07.2008
هاتر، إس، ليـاو، إتش-دبليو، تاكياو، إم، بيرسون، دي. إم، و ياو، كي-دبليو (2002). خلايا العقدة الشبكية الحاوية على الميلانوبسين: البنية والاتصالات والإحساس الضوئي الذاتي. مجلة العلوم، 295(5557)، 1065–1070. https://doi.org/10.1126/science.1069609
هنغن، كي. بي، تورّادو باتشِكو، آ، مكGregor، جي. إن، فان هووزر، إس. دي، و تورّيجيانو، جي. جي (2016). ثبات معدل إطلاق العصبونات يُثبَط بالنوم ويُعزَّز باليقظة. الخلية، 165(1)، 180–191. https://doi.org/10.1016/j.cell.2016.01.046
هِنش، تي. كي (2005). لدونة الفترة الحرجة في الدارات القشرية المحلية. مراجعات طبيعة لعلم الأعصاب، 6(11)، 877–888. https://doi.org/10.1038/nrn1787
إفري، آر. بي، و شليرف، جي. إي (2008). نماذج مخصصة وأخرى ذاتية للإحساس بالزمن. اتجاهات في العلوم المعرفية، 12(7)، 273–280. https://doi.org/10.1016/j.tics.2008.04.002
كييبل، إس. جي، داونيزاو، ج، و فرستون، ك. جي (2008). تسلسل هرمي من المقاييس الزمنية والدماغ. بلوس للأحياء الحاسوبية، 4(11)، e1000209. https://doi.org/10.1371/journal.pcbi.1000209
كليتيمان، إن (1982). دورة الراحة–النشاط الأساسية—بعد 22 سنة. النوم، 5(4)، 311–317. https://doi.org/10.1093/sleep/5.4.311
لايتمن، إس. إل، و كونيواي كامبل، ب. إل (2010). الدور الحاسم للفعالية النبضية لمحور HPA لتحقيق معادلة ديناميكية مستمرة. مراجعات طبيعة لعلم الأعصاب، 11(10)، 710–718. https://doi.org/10.1038/nrn2914
ليسكر، إل، و أبراهامسون، إيه. إس (1964). دراسة عبر لغات لتنغيم الحروف عند الوقفات الابتدائية: قياسات صوتية. Word، 20(3)، 384–422. https://doi.org/10.1080/00437956.1964.11659830
ليو، إن. إف، لين، ك، هيويت، ج، بارانجايب، آ، بيفيلاكوا، إم، بتروني، إف، و ليانغ، بي (2024). ضياع في المنتصف: كيف تستخدم نماذج اللغة السياقات الطويلة. معاملات رابطة اللغويات الحاسوبية، 12، 157–173. https://doi.org/10.1162/tacl_a_00638
ماكدونالد، سي. جي، لِباج، كيو، إيدن، يو. تي، و إيخنباوم، هـ (2011). خلايا “زمن” في الحُصين تسد الفجوة في الذاكرة للأحداث غير المتصلة. العصبون، 71(4)، 737–749. https://doi.org/10.1016/j.neuron.2011.07.012
ماكلوسكي، إم، و كوهِن، إن. جي (1989). التداخل الكارثي في الشبكات التوصيلية: مشكلة التعلّم التسلسلي. علم النفس في التعلّم والدافعية، 24، 109–165. https://doi.org/10.1016/S0079-7421(08)60536-8
ميرشانت، هـ، هارينغتون، دي. إل، و ميك، دبليو. إتش (2013). الأساس العصبي لإدراك الزمن وتقديره. مراجعة سنوية لعلم الأعصاب، 36، 313–336. https://doi.org/10.1146/annurev-neuro-062012-170349
موري، جي. دي، برناتشيا، إيه، فريدمان، دي. جي، رومو، آر، والِس، جي. دي، كاي، إكس، بادوا-شيوپّا، سي، باستِرنَك، تي، سيـو، هـ، لي، دي، و وانغ، إكس-جي (2014). تسلسل هرمي من الأزمنة الذاتية المتأصلة عبر قشرة الرئيسيات. علم الأعصاب الطبيعي، 17(12)، 1661–1663. https://doi.org/10.1038/nn.3862
باتون، جي. جي، و بوونو مانو، دي. في (2018). الأساس العصبي للتوقيت: آليات موزعة لوظائف متنوعة. العصبون، 98(4)، 687–705. https://doi.org/10.1016/j.neuron.2018.03.045
بوبل، إي (1997). نموذج هرمي للإدراك الزمني. اتجاهات في العلوم المعرفية، 1(2)، 56–61. https://doi.org/10.1016/S1364-6613(97)01008-5
تاكاهَاشي، جي. إس (2017). البنية النسخيّة لساعِد الساعة الدورية في الثدييات. مراجعات طبيعة في علم الوراثة، 18(3)، 164–179. https://doi.org/10.1038/nrg.2016.150
تونوني، جي، و سيريلّي، سي (2014). النوم وسعر اللدونة: من الثبات المشبكي والخَلَوي إلى ترسيخ الذاكرة وتكاملها. العصبون، 81(1)، 12–34. https://doi.org/10.1016/j.neuron.2013.12.025
تسوآو، إيه، سُكَر، جي، لو، إل، وانغ، سي، نيريم، جي. جي، موسر، إم-بي، و موسر، إي. آي (2018). دمج الزمن من الخبرة في القشرة المعوية الجانبية. مجلة Nature، 561(7721)، 57–62. https://doi.org/10.1038/s41586-018-0459-6
تسوداكس، إم. في، و ماركْرام، إتش (1997). الشفرة العصبية بين العصبونات الهرمية القشرية الجديدة تعتمد على احتمال إطلاق الناقل العصبي. وقائع الأكاديمية الوطنية للعلوم، 94(2)، 719–723. https://doi.org/10.1073/pnas.94.2.719
تورّيجانيانو، جي. جي (2008). العصبون مُضبط ذاتيًا: تحجيم مشابكي للمشابط المُثيرة. الخلية، 135(3)، 422–435. https://doi.org/10.1016/j.cell.2008.10.008
فاسواني، آ، شازير، ن، بارمار، إن، أوسزكويريت، ج، جونز، إل، غوميز، إيه. إن، كايزر، ل، و بولوسوخين، آي (2017). الانتباه هو كل ما تحتاجه. في Advances in Neural Information Processing Systems 30 (ص. 5998–6008). https://arxiv.org/abs/1706.03762
ويهر، تي. إيه (2001). الاستعداد الضوئي في البشر وباقي الرئيسيات: الدليل والآثار المترتبة. مجلة الإيقاعات البيولوجية، 16(4)، 348–364. https://doi.org/10.1177/074873001129002060
ويلتينغ، جي، و برايسِمان، في (2018). استنتاج الحالات الديناميكية الجماعية من أنظمة غير مُلاحَظة على نطاق واسع. اتصالات الطبيعة، 9، 2325. https://doi.org/10.1038/s41467-018-04725-4
وولّي، سي. إس، و ماكيوِن، بي. إس (1992). الإسترياديول يوسّط تقلب كثافة مشابك الحُصين أثناء الدورة الإسترية في الجرذ البالغ. مجلة علم الأعصاب، 12(7)، 2549–2554. https://doi.org/10.1523/JNEUROSCI.12-07-02549.1992
ياجِشيتا، إس، هاياشي-تاكاغي، آ، إليس-دافيز، جي. سي. آر، أوراكوبو، إتش، إيشي، إس، و كاساي، إتش (2014). نافذة زمنية حرجة لأفعال الدوبامين على اللدونة البنيوية للزوائد الشجرية. مجلة العلوم، 345(6204)، 1616–1620. https://doi.org/10.1126/science.1255514
زينغ، آ، تشين، إم، تشانغ، إل، و شيو، كيو (2023). هل المحوّلات فعّالة لتوقع سلاسل زمنية؟ وقائع مؤتمر AAAI للذكاء الاصطناعي، 37(9)، 11121–11128. https://doi.org/10.1609/aaai.v37i9.26317
زينكه، ف، غيرستنر، دبليو، و غانغولي، إس (2017). المفارقة الزمنية للتعلّم الهيبّي واللدونة المُعاوِدة للثبات (homeostatic). الرأي الحالي في علم الأعصاب، 43، 166–176. https://doi.org/10.1016/j.conb.2017.03.015
أكاديمية Neuraxon للذكاء: السلسلة الكاملة
واصل استكشاف العلم وراء الذكاء الاصطناعي الملهم من الدماغ، Aigarth، وNeuraxon في المجلدات السابقة من Neuraxon Intelligence Academy:
مجلد NIA 1: لماذا لا يُحسب الذكاء على خطوات، بل في الزمن— يستكشف لماذا يعمل الذكاء البيولوجي في زمن مستمر وليس كخطوات حوسبة منفصلة مثل نماذج LLM التقليدية.
مجلد NIA 2: الديناميات الثلاثية كت نموذج للذكاء الحي— يشرح الديناميات الثلاثية ولماذا تُعد منطق ثلاثي الحالات (مثبِّط، محايد، مُثبِّط) مهمة عند نمذجة الأنظمة الحية.
مجلد NIA 3: التعديل العصبي وAI الملهم من الدماغ— يغطي التعديل العصبي وكيف يُلهم إشعار الدماغ الكيميائي (الدوبامين، السيروتونين، الأسيتيل كولين، النورأدرينالين) بنية Neuraxon.
مجلد NIA 4: الشبكات العصبية في الذكاء الاصطناعي وعلم الأعصاب — مقارنة عميقة بين الشبكات العصبية البيولوجية والشبكات العصبية الاصطناعية ومنهج المسار الثالث لدى Neuraxon.
مجلد NIA 5: الخلايا النجمية وAI الملهم من الدماغ— كيف يحوّل بوّابة الخلايا النجمية لدونة الشبكة العصبية عبر إطار AGMP في Neuraxon.
مجلد NIA 6: آلات واعية مقابل كائنات واعية: شرح وعي الذكاء الاصطناعي— يستكشف وعي الذكاء الاصطناعي عبر عدسة نظرية المساحة الذهنية الشاملة (Global Workspace Theory) ونظرية المعلومات المتكاملة والبرمجة الترّؤية (predictive coding).
مجلد NIA 7: لعبة كونواي للحياة، الحياة الاصطناعية، والنظم البيئية الرقمية — العلم وراء Qubic وAigarth وتعقيد Neuraxon الناشئ ونظامه الحرج المنظم ذاتيًا.
مجلد NIA 8: حرج الدماغ ونسبة التفرّع في الشبكات العصبية والاصطناعية — لماذا تُعد نسبة التفرع القريبة من 1 والحرج المُنظَّم ذاتيًا مبادئ تصميم مُلهَمة حيويًا في Neuraxon.
مجلد NIA 9: أصول عامل g: من التعليم وعلم الأعصاب إلى الذكاء الاصطناعي— يستكشف أصول عامل g عبر التعليم وعلم الأعصاب والذكاء الاصطناعي.
مجلد NIA 10: كيف نقيس ذكاء آلة؟ عامل g وARC-AGI ومستقبل تقييم الذكاء الاصطناعي — عامل g، معيار ARC-AGI الخاص بفرانسوا شولتّي، تلوث البيانات في تقييمات LLM، ولماذا كفاءة اكتساب المهارات هي الاختبار الحقيقي للذكاء.
مجلد NIA 11: ما هو AGI؟ حدود، رؤى & تعريفات للذكاء العام الاصطناعي